Ce travail a été publié dans Nucleic Acids Res., Barbe et al., October 28, 2004; 32(19): 5766 - 5779.
Caractéristiques du genre
Acinetobacter
Le genre Acinetobacter est un groupe hétérogène qui réunit
des bactéries ubiquitaires, trouvées dans l’eau, le sol, les
organismes vivants, et même sur la peau humaine. Ces
gamma-protéobactéries sont désormais classées dans l'ordre des
Pseudomonadales et dans la famille des Moraxellacées. Au sein du
genre, elles se répartissent actuellement en 32 espèces génomiques
(définies par hybridation ADN-ADN), dont 17 ont été nommées (situation
fin 2003). Leur situation taxonomique était autrefois beaucoup plus
confuse, puisqu'elles étaient classées dans plus d'une dizaine de
genres différents. Le genre Acinetobacter, quant à lui, est
longtemps resté insuffisamment décrit, et a été redéfini à plusieurs
reprises (lire une courte histoire du genre
Acinetobacter).
Les bactéries gram négatives aujourd'hui classées dans le genre
Acinetobacter se distinguent par les caractéristiques suivantes
: elles sont oxydase-négatives, catalase-positives, aérobies strictes,
à métabolisme respiratoire strict ; dépourvues de flagelle, elles sont
immobiles, ne forment pas de spores, et apparaissent au microscope
sous la forme de cocci (en phase stationnaire) ou de courts bacilles,
souvent appariés, voire assemblés en chaînes plus longues.
Une autre caractéristique remarquable de nombreuses souches du
genre Acinetobacter est qu'elles sont capables d’utiliser une
gamme de composés très divers (1) comme
sources de carbone et d'énergie, et de croître sur des milieux
relativement simples. Ce métabolisme robuste leur confère une capacité
d’adaptation élevée qui explique que ces bactéries soient retrouvées
dans des environnements variés, comme leurs cousines du genre
Pseudomonas. Pour cette raison, elles suscitent un intérêt
croissant en vue d'applications biotechnologiques et
environnementales, telles que la bioremédiation (Abd El-Haleem, 2003). Certaines souches sont en
effet capables de dégrader ou de séquestrer de nombreux composés
polluants, notamment des composés aromatiques, des hydrocarbures et
des métaux lourds, et de produire des bioémulsifiants. D'autres
souches d'Acinetobacter au spectre nutritionnel plus étroit
(attribuées majoritairement à l'espèce A.
baumannii) ont quant à elles attiré l'attention par leur
implication dans des infections nosocomiales.
Enfin, une souche particulière d'Acinetobacter a suscité un
intérêt considérable, du fait de sa compétence remarquable pour la
transformation naturelle : dans certaines conditions, plus d'une
cellule sur cent peut être transformée par l'ADN présent dans le
milieu, quelle qu'en soit la source, à condition qu'une région
d'homologie demeure avec le génome receveur. Cette souche hautement
transformable a été obtenue en 1969 par mutagenèse à partir d'une
souche isolée du sol. D'abord décrite sous le nom de BD413, elle a été
renommée ADP1 en 1995 (pour en savoir plus sur l’histoire de la souche Acinetobacter baylyi
ADP1).
haut de page
Les raisons de l'intérêt pour la souche ADP1
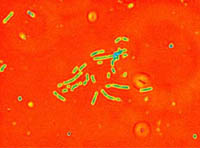 |
Acinetobacter baylyi ADP1 constitue un modèle intéressant pour
l'étude de la compétence pour la transformation naturelle, qui est un
état génétiquement
programmé. Les bactéries naturellement compétentes peuvent trouver
un avantage sélectif dans l'apport nutritif en nucléotides, la
réparation des allèles mutés par conversion génique, ou encore
l'acquisition de nouvelles fonctions par intégration d'ADN non
homologue.
Quand Acinetobacter ADP1 est transformé, l'ADN double brin se lie à la cellule et est importé sous forme
simple brin, même s'il provient d'organismes non apparentés à Acinetobacter (Palmen et al., 1993).
Dans le genre Acinetobacter, seules les souches dérivées, comme ADP1, de l'isolat du sol BD4 présentent cette compétence naturelle.
Les études portant sur la structure et la fonction du système de transformation naturelle d'ADP1 ont conduit au premier modèle du translocateur
d'ADN de cette souche (Porstendörfer et al., 2000, Friedrich et al., 2001).
Un point intéressant est la présence de plusieurs protéines conservées similaires aux composants des pili de type IV. En dépit de ces similitudes,
il est clair que les deux systèmes de pili présents chez ADP1 n'ont aucun lien avec la transformation naturelle.
Ces résultats suggèrent que le translocateur d'ADN d'ADP1 et les pili de type IV ont évolué à partir d'un ancetre commun,
mais que l'évolution a conduit à des structures distinctes exerçant des fonctions différentes (Averhoff, 2004).
La compétence d'ADP1 a été exploitée dans de nombreux travaux. Par
exemple, il est possible de transformer directement ADP1 par des
produits de PCR. L'équipe de N. Ornston introduit ainsi des fragments
d’ADN issus de mutagenèses par PCR, afin d'étudier l’expression de
versions mutées de gènes hétérologues (Kok et
al., 1999). Si l’on s’intéresse à présent à la diversité
naturelle, on peut essayer de récupérer dans ADP1 des gènes nouveaux,
aux fonctionnalités intéressantes, à partir d'ADN de souches isolées
du sol ou d'autres environnements naturels. Par ailleurs, la
transformation demeure efficace lorsqu'ADP1 est directement placé dans
un échantillon de sol humide ou d'eau usée, (Lorenz et al., 1992), ce qui fait de cette
souche un excellent modèle pour l'étude du transfert horizontal de
gènes entre microorganismes de l'environnement. Acinetobacter baylyi
ADP1 peut même développer un état de compétence lorsqu’elle
colonise une plante infectée par la bêta-protéobactérie Ralstonia
solanacearum ; cela a permis d'étudier la possibilité d'un
transfert horizontal d'ADN d'une plante transgénique vers une bactérie
(Nielsen et al., 2000 ; (Kay et al., 2002). On envisage également
d'exploiter la compétence de la souche ADP1 dans le sol pour récupérer
des gènes nouveaux à partir de souches bactériennes non
cultivables. De même, ADP1 reste transformable lorsqu'elle croît sous
forme de biofilms. Ceux-ci pourraient donc être "augmentés"
directement au sein de réacteurs et acquérir ainsi de nouvelles
capacités de biocatalyse, par exemple dans le retraitement des eaux
usées (Hendrickx et al., 2003).
La condition pour que la transformation
naturelle ait lieu demeure bien sûr l'existence d'un degré d'homologie
suffisant pour que l'ADN exogène s'intègre (Young
et al., 2001). Cette exigence a été mise à profit pour
valider les frontières du groupe Acinetobacter : Elliot Juni a testé en 1972 les ADN de 265 souches,
aux phénotypes très divergents, pour leur capacité à restaurer la
croissance sur milieu minimum d'un mutant ADP1 auxotrophe pour le
tryptophane. Il a ainsi confirmé que toutes ces souches forment avec
ADP1 un vaste genre, à l'exclusion des souches oxydase
positives.
Enfin, la compétence élevée d'ADP1 constitue évidemment une aubaine
pour l'étude génétique de cette souche non pathogène, dont la
croissance rapide sur des milieux simples (temps de doublement
inférieurs à une heure, à 30°C comme à 37°C) facilite la
manipulation. Il est très facile de transformer ADP1 pour inactiver un
gène, ou le placer sous le contrôle d'un nouveau promoteur. On dispose
ainsi d'un moyen d'étude commode des voies métaboliques. Or celles-ci
sont d'une grande richesse chez ADP1 : comme les autres souches
d'Acinetobacter isolées de l'environnement, elle présente un
large spectre nutritionnel (il s'agit même d'une des rares souches
d'Acinetobacter à pousser sur glucose ; voir la liste des composés qu'ADP1 est capable d'utiliser
comme unique source de carbone et d'énergie) et s'avère capable de
dégrader de nombreux composés. Toutes ces raisons nous ont conduit à
entreprendre le séquençage du génome d'ADP1 (voir Projet
de séquençage). La séquence annotée a permis de mener des études
de génomique comparatives avec les bactéries apparentées telles
qu'Escherichia coli et les espèces du genre Pseudomonas
; elle permet aussi et surtout de mener un programme systématique
d'inactivation des gènes d'ADP1, dans le but de faire de cette souche
au riche répertoire génétique un organisme modèle pour l'étude des
transformations métaboliques dans l'environnement.
haut de page
Paysage génomique d'Acinetobacter baylyi ADP1
Le génome de la souche Acinetobacter baylyi ADP1 est composé
d'un unique chromosome circulaire de 3 598 621 paires de bases
(pb). Son contenu en G+C (GC%) est de 40,3% (les GC% des souches
réunies dans le genre Acinetobacter sont compris entre 38% et
47%). Curieusement, cette valeur est assez éloignée de celles des
trois espèces séquencées du genre Pseudomonas (GC% de 58,4% à
66,6%) alors que les comparaisons des séquences des ADNr 16S indiquent
au contraire qu'Acinetobacter et Pseudomonas sont
étroitement apparentées.
L'annotation de la séquence génomique d'ADP1 a été réalisée sur la
plate-forme d'annotation de l'AGC (Atelier de Génomique
Comparative) au Genoscope, et les données sont accessibles dans la
base de données AcinetoScope.
L'interface graphique d'annotation MaGe
permet de visualiser les résultats de l'annotation automatique
(courbes de probabilité de codage) avec les choix de l'annotateur et
les données de synténie.
Le processus
d'annotation, conduit en deux phases (linéaire le long du
chromosome, puis par thématique biologique), a livré 3325 séquences
codantes (CDS). Leur longueur moyenne est de 930 pb ; la plus petite
mesure 69 pb, la plus grande 11 133 pb. Nous avons aussi identifié 76
espèces d'ARNt et 7 opérons d'ARNr, ainsi que trois autres motifs ARN,
dont les composantes ribonucléiques de la ribonucléase P et du
complexe SRP (reconnaissance du peptide signal).
Les séquences répétées représentent 1,6% de la séquence
génomique. Six copies d'une séquence d'insertion de la famille IS3 ont
été identifiées, dont le GC% ne diffère pas sensiblement de la valeur
globale du génome d'ADP1. Elles ne semblent donc pas avoir contribué
de façon importante à des événements de transfert horizontal, tout au
moins pour ce qui est des génomes donneurs au GC% très
différent. L'analyse du génome a également révélé deux régions
prophagiques principales. Dans la plus longue (54 kb) ont été
identifiés 64 gènes, dont 45 sont uniques à Acinetobacter. Les
autres ressemblent à des séquences phagiques trouvées chez Xyllela
fastidiosa et Pseudomonas putida. Des études sont en cours
pour déterminer si cette région correspond encore à un prophage
fonctionnel. La séquence de la seconde région prophagique, qui mesure
9 kb, est quant à elle similaire à celle d'un phage filamenteux de
Pseudomonas aeruginosa (Pf3).
haut de page
Orthologues et synténie
Les comparaisons dans les bases de données ont permis d'assigner
une fonction à plus de 62% des 3325 gènes codant des protéines qui ont
été identifiés dans la séquence génomique (35% de façon définitive, et
27% de façon putative). En outre, 20,3% des CDS ont été identifiées
comme des protéines "hypothétiques conservées" (homologues à d'autres
protéines sans fonction connue chez d'autres organismes). Enfin, 13,9%
des protéines ont été désignées comme "hypothétiques", propres à
Acinetobacter baylyi ADP1. Les 3,2% CDS restantes ont été annotées
comme douteuses.
Comme l'étude phylogénétique basée sur l'ARN 16S l'avait déjà
indiqué, les protéomes les plus proches de celui
d'Acinetobacter baylyi ADP1 appartiennent aux trois espèces
séquencées de Pseudomonas. Ce résultat apparaît lorsqu'on
recherche les CDS d'Acinetobacter telles que le gène le plus
homologue à la CDS considérée, au sein d'un autre génome, admet en
retour cette CDS comme la plus homologue au sein du génome d'ADP1
(Bidirectionnal Best Hits, BBH). La souche ADP1 partage avec
Pseudomonas aeruginosa plus de 63% de BBH. Viennent ensuite les
deux autres espèces de Pseudomonas et deux autres
gamma-protéobactéries séquencées, Ralstonia solanacearum et
Escherichia coli. Si l'on considère à présent le pourcentage de
CDS en synténie (définie comme la colocalisation chromosomique entre
paires de gènes orthologues d'un génome à un autre), on trouve de
nouveau P. aeruginosa comme la bactérie la plus proche d'ADP1,
puis les espèces précitées, dans le même ordre. Enfin, si l'on
considère les catégories
fonctionnelles, on constate que les catégories les plus
représentées, chez ADP1, sont les fonctions enzymatiques et les
systèmes de transport. On retrouve une nette proximité d'ADP1 avec les
autres bactéries de l'environnement, les Pseudomonas et la
bactérie phytopathogène du sol Ralstonia solanacearum : ces
génomes ont en commun une proportion élevée de gènes associés au
transport des ions inorganiques, à la sécrétion et à la biosynthèse
des métabolites secondaires, qui reflètent l'importance des
interactions avec l'environnement. L'ensemble de ces résultats est
accessible dans un tableau
récapitulatif. Les résultats de BBH et de synténie sont visibles
sous la forme d’un histogramme
pour 37 génomes bactériens.
Nous avons identifié une région de 18 kb, délimitée par des groupes
de synténie très bien conservés, qui semble l'indice d'événements de
transfert horizontal. La conservation est très élevée avec les génomes
du phytopathogène P. syringae, de deux Vibrio et avec le
mégaplasmide de R. solanacearum. L'hypothèse de transferts
horizontaux entre cette dernière bactérie et Acinetobacter
n'est pas neuve : les souches du sol d'Acinetobacter, telles
qu'ADP1, sont adaptées à la diversité biochimique créée par les
plantes, et sont capables de coloniser les tissus végétaux de façon
opportuniste lors d'une infection par R. solanacearum ; dans de
telles niches, on a déjà observé entre les deux bactéries des
événements de transfert conjugatif de plasmides et de transfert de
gènes chromosomiques par transformation à des fréquences
significatives (Kay et al., 2002).
haut de page
Annotation fonctionnelle
Plus de 60% des gènes d'Acinetobacter baylyi ADP1 ont été
trouvés dans des groupes
de synténie avec les 145 génomes bactériens comparés. Cette
conservation nous a permis de tenir compte de l'environnement en gènes
lors de l'annotation fonctionnelle, ce qui s'est avéré
particulièrement utile en cas de faible similarité avec des gènes de
fonction connue. Certaines des caractéristiques les plus remarquables
du répertoire de gènes d’ADP1 sont indiquées ci-dessous pour plusieurs
grandes fonctions biologiques.
- Réplication : La machinerie de réplication d’ADP1 est
assez semblable à celle d’E. coli. Une particularité très
intéressante est la fusion du gène dnaQ, dont le produit chez
E. coli est responsable de l’activité exonucléase 3’->5’ qui
corrige les erreurs lors de la réplication, et du gène rnhA,
dont le produit, la RNase HI, dégrade les amorces ARN à l’origine des
fragments d’Okazaki lors de la synthèse du brin tardif. Chez les
protéobactéries, ces deux gènes sont souvent colocalisés dans un
groupe de synténie plus vaste, mais leur fusion n’avait jamais encore
été observée. Elle pourrait permettre à la bactérie d’optimiser la
synthèse du brin tardif.
- Production d’énergie : La capacité d’ADP1 de croître
sur glucose, malgré l’absence de plusieurs enzymes de la glycolyse
(glucokinase, hexokinase et système phosphotransférase) a déjà été
évoquée. Les détails du catabolisme
du glucose chez ADP1 sont exposés sur une autre page.
- Vie aérobie : Comme attendu, le génome d’Acinetobacter
ADP1, une bactérie aérobie stricte, est dépourvu du gène
fnr qui, chez E. coli, régule près de 70 gènes impliqués
dans l’adaptation à un environnement anoxique. De même, on relève
l’absence du gène oxyS, dont le produit est un petit ARN
antisens impliqué chez E. coli dans la réponse au choc
oxydatif.
- Assimilation des nitrites et nitrates : Les gènes
codant les protéines impliquées dans l’assimilation des nitrates
forment un cluster. L’un de ces gènes, pour laquelle l’annotation
automatique indique une similarité avec la FAD oxydoréductase de
Ralstonia, semble en fait correspondre à un produit de fusion
codant les petites sous-unités de la nitrite réductase et de la
nitrate réductase. Les indices en ces sens sont les données de
synténie et la nature des produits des gènes qui le flanquent (grandes
sous-unités de la nitrite réductase et de la nitrate réductase).
- Assimilation du sulfate : On retrouve bien dans le
génome d’ADP1 les gènes codant les deux sous-unités de l’ATP
sulfurylase. Cette enzyme estérifie le sulfate avec une molécule d’ATP
pour donner l’adénosine 5’ phosphosulfate (APS). En revanche, l’APS
kinase, qui phosphoryle l’APS en phosphoadénosine 5’ phosphosulfate
(PAPS) chez les entérobactéries, est ici absente. L’ion sulfite,
produit chez E. coli par réduction du PAPS, serait directement
produit par réduction de l’APS chez Acinetobacter baylyi ADP1, au
moyen d’une enzyme homologue à la PAPS réductase de E. coli,
mais qui présente deux motifs caractéristiques d’APS réductases
végétales et bactériennes.
- Biosynthèse des polyamines : On avait déjà noté
l’absence chez Acinetobacter des polyamines telles que la
putrescine et ses dérivés, spermidine et spermine. Elles sont
remplacées par le diaminopropane, que ces bactéries produisent en
grande quantité. L’analyse du génome révèle comme attendu l’absence de
la S-adénosylméthionine décarboxylase et de la spermidine synthétase,
deux enzymes qui interviennent dans la production de spermidine à
partir de la putrescine. On trouve toutefois chez ADP1 plusieurs
décarboxylases qui devraient produire de la putrescine et de la
cadavérine, alors que ces polyamines sont à peine détectables chez
Acinetobacter baumannii.
- Métabolisme
des polysaccharides : (résultats discutés sur une autre
page)
- Ilots
cataboliques : (résultats discutés sur une autre page)
- Compétence
pour la transformation : (résultats discutés sur une autre
page)
haut de page
Histoire du genre Acinetobacter
L'histoire des bactéries gram- aujourd'hui rassemblées dans le
genre Acinetobacter est complexe. Ces bactéries ont été
classées dans plus de 10 genres, dont "Achromobacter", Alcaligenes,
"Bacterium", "Herellea", "Mima", Neisseria, ... Il s'agit en effet
de bactéries ubiquistes, isolées indépendamment par différents auteurs
à partir de sources variées, et pour lesquelles manquent des
caractères d'identification spécifiques. Il en a résulté une grande
confusion taxonomique.
Les premières souches d'Acinetobacter sont isolées en 1911,
à partir du sol, par M.W. Beijerinck qui
les nomme Micrococcus calcoaceticus. Ces bactéries sont par la
suite redécouvertes et renommées à plusieurs reprises. En 1954, J. Brisou et A.R. Prévot créent le genre
Acinetobacter pour rassembler, parmi les saprophytes gram- qui
ne produisent pas de pigments (tribu des Achromobactereae), les
bactéries immobiles. Le genre, sous-défini, inclut des bactéries
manifestement non apparentées. En 1957, Brisou désigne
A. anitratum comme l'espèce type. L'application du test à
l'oxydase aux bactéries du genre Acinetobacter montre que ce
genre rassemble des souches oxydase positives et oxydase négatives. En
1968, P. Baumann et ses collègues
s'intéressent plus largement à une centaine de souches
oxydase-négatives réunies dans le groupe Moraxella (bactéries
gram- aérobies strictes et sans flagelle). Ils les soumettent à une
étude de taxonomie numérique, où est testée la croissance à partir de
158 substrats carbonés différents. Baumann et al. montrent que
ces souches se distinguent clairement des Moraxellas oxydase
positives, en particulier par leur spectre nutritionnel beaucoup plus
large, et proposent de les réunir au sein du genre
Acinetobacter, redéfini comme indiqué dans l'introduction. En
1971, le "sous-comité pour la taxonomie des Moraxella et des bactéries
apparentées" valide la décision de restreindre le genre
Acinetobacter aux souches oxydase négatives.
Baumann et al. demeurent prudents quant à la subdivision du
nouveau genre Acinetobacter. Ils proposent néanmoins
l'existence de trois espèces, dont l'espèce type
A. calcoaceticus. Les premiers travaux d'hybridation ADN-ADN
par J. Johnson et al. confirment à la
fois la nette séparation entre les souches du genre
Acinetobacter et les souches oxydase-positives, mais aussi
l'hétérogénéité des Acinetobacter. L'utilisation de la souche
ADP1 dans des tests de transformation, en
1972, renforce encore ces conclusions. Il reste toutefois difficile de
distinguer des espèces sur la base de leurs caractéristiques
physiologiques, et, au début des années 1980, l'habitude est prise de
considérer une unique espèce, A. calcoaceticus.
A partir de 1986 et des premiers travaux de P. Bouvet et P. Grimont, la taxonomie du genre
Acinetobacter est réorganisée en combinant les résultats des
hybridations ADN-ADN avec les caractères phénotypiques (pour des
détails, voir la revue
très complète de J.P. Euzéby). Ces études nombreuses aboutissent,
fin 2003, à la définition de plus de 30 espèces génomiques, dont la
moitié environ sont nommées. En 1997, l'analyse des séquences d'ADNr
16S de souches représentatives de l'ensemble des espèces génomiques
alors décrites confirme la cohérence du genre et suggère l'existence
en son sein de 5 grands groupes (Ibrahim et
al., 1997), tandis que l'étude phylogénétique des gènes gyrB
et rpoD, en 1999, conforte les relations de parentés des souches
réunies au sein des différentes espèces génomiques (Yamamoto et al., 1999).
Le genre Acinetobacter a d'abord été classé dans la famille
des Neisseriaceae, avec les genres Neisseria,
Moraxella et Kingella. Durant la fin des années 1980,
des études d'hybridation ADN-ARNr soulignent l'hétérogénéité de cette
famille, dont J. De Ley propose d'exclure les genres Moraxella,
Acinetobacter et Psychrobacter. En 1991, il réunit ces
genres dans la nouvelle famille des Moraxellaceae (Rossau et al., 1991).
haut de page
Histoire de la souche ADP1
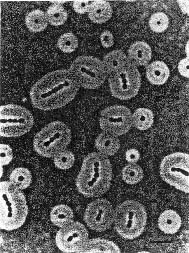 Aspect des cellules d'Acinetobacter sp. BD4, l'isolat
du sol d'où dérive ADP1. La coloration à l'encre de chine révèle la
capsule très épaisse qui entoure ces bactéries, ici sous forme de
cocci isolés ou en chaine. La souche ADP1 (BD413) est un mutant
minicapsulé de BD4. (photo tirée de Taylor et
Juni, 1961) |
L'origine de la souche ADP1 remonte aux travaux de W.H. Taylor et E. Juni en 1960. Ces deux auteurs
étudiaient des bactéries gram- capables de synthétiser des
polysaccharides capsulaires à partir de sources de carbone
simples. Ils ont isolé à partir du sol une souche de cocci gram-
capsulés capables d'utiliser le méso-2,3-butanediol comme seule source
de carbone et d'énergie, et ont nommé cette souche BD4 (pour
ButaneDiol). La capsule de BD4 est particulièrement épaisse (voir
image encre de chine). Relâchés dans le milieu, les polysaccharides
capsulaires, constitués de rhamnose, glucose, mannose et acide
glucuronique (Kaplan et al., 1985),
forment avec les protéines un complexe qui agit comme un émulsifiant
efficace (Kaplan et al.,
1987). Entreprise pour comprendre la biosynthèse de ces
polysaccharides, l'étude du métabolisme des sucres chez BD4 montra que
cette souche est capable de croître sur gluconate et sur glucose, en
dépit de l'absence de la première enzyme de la glycolyse, la
glucokinase. Le glucose 6-phosphate, au départ de la biosynthèse des
polysaccharides, est en fait synthétisé par les voies
d'Entner-Doudoroff et de la néoglucogenèse (voie d'Embden-Meyerhof),
après que le glucose a été oxydé en gluconate (Taylor et Juni II et III, 1961). Lorsque la
souche BD4, en 1968, fut classée dans le genre Acinetobacter et
dans l'espèce A. calcoaceticus, il apparut qu'il s'agissait
d'une des rares souches d'Acinetobacter capable d'utiliser un
hexose comme seule source de carbone et d'énergie. Toutefois, de
nombreuses autres souches sont capables d'oxyder le glucose ou
d'autres sucres (Baumann et al.,
1968).
En 1968, E. Juni et A. Janik voulurent étudier
plus avant la biosynthèse de la capsule de BD4 en isolant les
métabolites intermédiaires de cette biosynthèse : après mutagenèse au
moyen de rayons ultraviolets ou d'acridine orange, ils sélectionnèrent
plusieurs mutants non-capsulés, qu'ils cultivèrent par paires dans le
but de mettre en évidence une complémentation par échange de
métabolites. Plusieurs de ces cocultures donnèrent effectivement des
cellules capsulées, mais ce phénotype ne pouvait être expliqué par la
diffusion de métabolites d'un type de mutant à un autre : une fois
isolées, ces cellules conservaient leur capsule. Juni et Janik
exclurent également l'hypothèse d'une réversion vers le phénotype
capsulé. Ils montrèrent que chaque mutant "néocapsulé" avait été
transformé très efficacement par l'ADN du mutant cultivé avec lui, et
que la souche sauvage BD4 était elle aussi compétente pour la
transformation naturelle (la compétence n'est donc pas liée à
l'absence de capsule). Cette découverte fortuite semble due au
gonflement des cellules cultivées sur glucose ou gluconate, et à la
libération d'ADN consécutive à leur éclatement. Une hypothèse pour
expliquer le gonflement est l'augmentation de pression osmotique due à
l'accumulation de phosphoénolpyruvate ; celui-ci est produit à partir
du glycéraldéhyde 3-phosphate issu du catabolisme du glucose et qui,
chez les mutants non capsulés, ne serait plus consommé dans la
néoglucogenèse.
Juni et Janik remarquèrent que deux de leurs souches mutantes,
BD413 et BD414, possèdaient en fait une minuscule capsule. La souche
BD413 pouvait être cultivée en milieu liquide sans que les cellules
s'agglutinent, comme le font les cellules des autres souches mutantes
ou celles de la souche sauvage BD4 lorsqu'on les débarasse de leur
capsule. Parce qu'elle était plus commode à manipuler, BD413 fut donc
retenue pour des études ultérieures sur la compétence pour la
transformation naturelle. En 1985, cette souche fut renommée ADP1 dans
le laboratoire de Nicholas
Ornston, à l'université Yale, et son appartenance à l'espèce
Acinetobacter calcoaceticus a été remise en cause en 1996 sur
la base d'une étude phylogénétique fondée sur la séquence de l'ADNr
16S (Strätz et al., 1996). Par
conséquent, elle est désormais désignée sous le nom
d'Acinetobacter baylyi ADP1.
haut de
page
(1)Liste des types de composés sur
lesquels peuvent pousser certaines souches d'Acinetobacter :
Hydrocarbures, alcools aliphatiques, glycol et polyols, hydrates de
carbone, acides aliphatiques et composés aromatiques non azotés,
acides aminés, amines et composés azotés divers.
(2)Les composés suivants peuvent être
utilisés par ADP1 comme unique source de carbone et d'énergie (de
nombreux autres composés, sur lesquels peuvent pousser certaines
souches d'Acinetobacter, n'ont pas été testés) : Benzoate,
p-hydroxybenzoate ; anthranilate ; salicylate ; férulate ; vanillate ;
quinate ; shikimate ; cafféate ; coumarate ; chlorogénate ; acides
dicarboxyliques à chaîne linéaire ; acétate ; acides gras à chaîne
linéaire ; éthanol ; lactate ; pyruvate ; glucose.
Bibliographie :
Abd El-Haleem, D. (2003) Acinetobacter : Environmental and Biotechnological Applications. African Journal of Biotechnology 2: 71-74.
Averhoff, B. (2004) DNA transport and natural transformation in mesophilic and thermophilic bacteria. J. Bioenerget. Biomembr. 36: 25-33.
Baumann, P., Doudoroff, M., and Stanier, R.Y. (1968) A Study of the Moraxella Group II. Oxydative-negative Species (Genus Acinetobacter). J. Bacteriol. 95: 1520-1541.
Beijerinck, M.W. (1911) Über Pigmentbildung bei Essigbakterien. Centr. Bakteriol. Parasitenk. Abt. II 29: 169-176.
Bouvet, P.J.M., and Grimont, P.A.D. (1986) Taxonomy of the Genus Acinetobacter with the Recognition of Acinetobacter baumannii sp. nov., Acinetobacter haemolyticus sp. nov., Acinetobacter johnsonii sp. nov., and Acinetobacter junii sp. nov. and Emended Descriptions of Acinetobacter calcoaceticus and Acinetobacter lwoffii. Int. J. Syst. Bacteriol. 36: 228-240.
Brisou, J., and Prévot, A.R. (1954) Etudes de Systématique Bactérienne. X. Révision des espèces réunies dans le genre Achromobacter. Ann. Inst. Pasteur 86: 722-728.
Friedrich, A., Hartsch, T., and Averhoff, B. (2001) Natural transformation in mesophilic and thermophilic bacteria: Identification and charcterization of novel, closely related competence genes in Acinetobacter sp. strain BD413 and Thermus thermophilus HB27. Appl. Environ. Microbiol. 67: 3140-3148.
Hendrickx, L., Hausner, M. and Wuertz, S. (2003) Natural Genetic Transformation in Monoculture Acinetobacter sp. Strain BD413 Biofilms. Appl. Environ. Microbiol. 69: 1721-1727.
Ibrahim, A., Gerner-Smidt, P. and Liesack, W. (1997) Phylogenetic Relationship of the Twenty-one DNA Groups of the Genus Acinetobacter as Revealed by 16S Ribosomal DNA Sequence Analysis. Int. J. Syst. Bacteriol. 47: 837-841.
Johnson, J.L., Anderson, R.S. and Ordal, E.J. (1970) Nucleic Acid Homologies Among Oxidase-negative Moraxella species. J. Bacteriol. 101: 568-573.
Juni, E. (1972) Interspecies Transformation of Acinetobacter: Genetic Evidence for a Ubiquitous Genus. J. Bacteriol. 112: 917-931.
Juni, E., and Janik, A. (1969) Transformation of Acinetobacter calco-aceticus (Bacterium anitratum). J. Bacteriol. 98: 281-288.
Kaplan, N., Rosenberg, E., Jann, B., and Jann, K. (1985) Structural Studies of the Capsular Polysaccharide of Acinetobacter calcoaceticus BD4. Eur. J. Biochem. 152: 453-458.
Kaplan, N., Zosim, Z., and Rosenberg, E. (1987) Reconstitution of emulsifying activity of Acinetobacter calcoaceticus BD4 emulsan by using pure polysaccharide and protein. Appl. Environ. Microbiol. 53: 440-446.
Kay, E., Vogel, T.M., Bertolla, F., Nalin, R., and Simonet, P. (2002) In Situ Transfer of Antibiotic Resistance Genes from Transgenic (Transplastomic) Tobacco Plants to Bacteria. Appl. Environ. Microbiol. 68: 3345-3351.
Kok, R.G., Young, D.M., and Ornston, L.N. (1999) Phenotypic Expression of PCR-Generated Random Mutations in a Pseudomonas putida Gene After Its Introduction into an Acinetobacter Chromosome By Natural Transformation. Appl. Environ. Microbiol. 65: 1675-1680.
Lorenz, M.G., Reipschlager, K., and Wackernagel, W. (1992) Plasmid transformation of naturally competent Acinetobacter calcoaceticus in non-sterile soil extract and groundwater. Arch. Microbiol. 157: 355-360.
Nielsen, K.M., van Elsas, J.D., and Smalla, K. (2000) Transformation of Acinetobacter sp. strain BD413 (pFG4-nptII) with transgenic plant DNA in soil microcosms and effects of kanamycin on selection of transformants. Appl. Environ. Microbiol. 66: 1237-1242.
Palmen, R., Vosman, B., Buijsman, P., Breek, C.K.D., and Hellingwerf, K.J. (1993) Physiological Characterization of Natural Transformation in Acinetobacter calcoaceticus. J. Gen. Microbiol. 139: 295-305.
Porstendörfer, D., Gohl, O., Mayer, F., and Averhoff, B. (2000) ComP, a pilin-like protein essential for natural competence in Acinetobacter sp. BD413: Regulation, modification, and cellular locaalization. J. Bacteriol. 182: 3673-3580.
Rossau, R., Valandschoot, A., Gillis, M., and De Ley, J. (1991) Taxonomy of Moraxellaceae fam. nov., a new bacterial family to accomodate the genera Moraxella, Acinetobacter and Psychrobacter and related organisms. Int. J. Syst. Bacteriol. 41: 310-319.
Strätz, M., Mau, M., and Timmis, K.N. (1996) System to Study Horizontal Gene Exchange Among Microorganisms Without Cultivation of Recipients. Mol. Microbiol. 22: 207-215.
Taylor, W.H., and Juni, E. (1961) Pathways for Biosynthesis of a Bacterial Capsular Polysaccharide I. Characterization of the Organism and Polysaccharide. J. Bacteriol. 81: 688-693.
Taylor, W.H., and Juni, E. (1961) Pathways for Biosynthesis of a Bacterial Capsular Polysaccharide II. Carbohydrate Metabolism and Terminal Oxydation Mechanisms of a Capsule-Producing Coccus. J. Bacteriol. 81: 694-703.
Taylor, W.H., and Juni, E. (1961) Pathways for Biosynthesis of a Bacterial Capsular Polysaccharide III. Syntheses From Radioactive Substrates. J. Biol. Chem. 236: 1231-1234.
Yamamoto, S., Bouvet, P.J., and Harayama, S. (1999) Phylogenetic structures of the genus Acinetobacter based on gyrB sequences: comparison with the grouping by DNA-DNA hybridization. Int. J. Syst. Bacteriol. 49: 87-95.
Young, D.M., and Ornston, L.N. (2001) Functions of the mismatch repair gene mutS from Acinetobacter sp. strain ADP1. J. Bacteriol. 183: 6822-6831.


 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

