|
|
|
Tetraodon
nigroviridis
Un poisson à génome compact |
|
|
Résumé
 |
Le poisson Tetraodon nigroviridis possède un génome de 350 Mb,
le plus petit génome connu à ce jour parmi les vertébrés. Cette
caractéristique le rend très attractif pour des études génomiques, et
elle a motivé le lancement d'un projet de séquençage au Genoscope en
1997, l'année même de la mise en route du centre. L'objectif initial
du Genoscope était de comparer les séquences génomiques de ce poisson
à celles de l'homme pour assister l'annotation des gènes humains et
évaluer leur nombre. Cette stratégie est fondée sur l'héritage
génétique commun des vertébrés : d'une espèce de vertébré à une autre,
fussent-elles aussi distantes qu'un poisson et un mammifère, on
retrouve en grande partie les mêmes gènes. Dans le cas du génome
"compact" de Tetraodon, ce bagage commun de gènes est en outre
compris dans un génome huit fois plus petit que le génome humain:
alors que la longueur des exons est similaire chez les deux espèces,
la taille des introns et des séquences intergéniques est fortement
réduite chez le poisson. En outre, ces régions, à la différence des
exons, ont complètement divergé depuis la séparation des lignées de
l'homme et de Tetraodon. La méthode Exofish, développée au
Genoscope, exploite ce contraste afin que les régions conservées
identifiées par la comparaison des séquences génomiques correspondent
aux seules régions codantes. Grâce aux premiers résultats du
séquençage de Tetraodon, le Genoscope a évalué, en 2000, le
nombre des gènes humains à environ 30 000, alors que des estimations
bien plus élevées avaient cours. Les progrès de l'annotation du génome
humain ont depuis étayé l'hypothèse du Genoscope, avec des valeurs
aussi basses que 22 000 gènes et un consensus autour de 25 000
gènes.
Le séquençage du génome de Tetraodon, effectué conjointement
par le Genoscope et le Whitehead Institute Center for Genome Research
(aujourd'hui Broad Institute)
à une profondeur d'environ 8X, s'est achevé en 2002, avec un
assemblage couvrant 90% de l'euchromatine du poisson. Cela a permis
une application d'Exofish à plus grande échelle dans des comparaisons
avec le génome de l'homme, mais aussi avec ceux de deux autres
vertébrés séquencés (le poisson Takifugu, proche parent de
Tetraodon, et la souris). Les régions conservées ainsi
détectées ont été intégrées dans la procédure d'annotation avec
d'autres ressources (séquences d'ADNc de Tetraodon et
prédictions ab initio). Parmi les 28 000 gènes annotés,
certaines familles - sélénoprotéines, cytokines de type 1 et
leurs récepteurs - ont fait l'objet d'un effort particulier. La
comparaison du protéome de Tetraodon avec ceux des mammifères a
fait apparaître certaines différences intéressantes, telles que la
diversification plus importantes de certains systèmes hormonaux et des
molécules de collagène chez les poissons.
La recherche des éléments transposables dans les séquences génomiques
de Tetraodon a révélé une diversité importante (75 types) qui
contraste avec leur rareté: la petite taille du génome de
Tetraodon résulterait donc de la présence en petit nombre de
ces éléments dont certains apparaissent encore actifs. Un autre
facteur de compacité du génome de Tetraodon, confirmé par
l'annotation, est la réduction de la taille des introns, qui les fait
tendre vers une limite basse de 50-60 pb, et qui affecte
préférentiellement certains gènes.
La disponibilité des séquences des génomes de l'homme et de la souris
d'une part, de Takifugu et de Tetraodon d'autre part, offre des
opportunités nouvelles pour l'étude de l'évolution des vertébrés. Nous
avons montré que le taux d'évolution neutre est plus élevé chez les
poissons que chez les mammifères. Les séquences protéiques des
poissons divergeraient également plus vite que celles des
mammifères. L'un des mécanismes de l'évolution est la duplication des
gènes, que nous avons étudié en tirant parti de l'ancrage de la
majorité des séquences de l'assemblage sur les chromosomes. Le
résultat de cette étude témoigne fortement en faveur de l'hypothèse
d'une duplication de l'ensemble du génome, survenue tôt dans la lignée
des poissons à nageoires rayonnées (Actinoptérygiens). Cela est
confirmé de façon encore plus nette par l'étude des relations de
synténie entre les génomes de l'homme et de Tetraodon. Grâce à
une carte de synténie à haute résolution, nous avons reconstitué le
génome du vertébré ancestral antérieur à la duplication, dernier
ancêtre commun à l'ensemble des vertébrés osseux. De ce caryotype
ancestral, constitué de 12 chromosomes, on passe au génome de
Tetraodon par un petit nombre de réarrangements
interchromosomiques, tandis que les échanges entre chromosomes
auraient été beaucoup plus nombreux dans la lignée conduisant à l'être
humain. Tous ces résultats sont présentés dans un article
paru dans le numéro du 21 octobre 2004 de la revue Nature.
haut de page
Ecologie et position systématique de Tetraodon nigroviridis
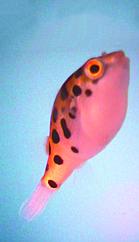
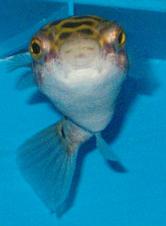
Tetraodon nigroviridis est un petit poisson (moins d'une
dizaine de centimètres en captivité) prisé des aquariophiles. Dans la
nature, on le trouve dans les cours d'eau d'Asie du Sud-Est
(Indonésie, Indochine, Malaisie, Philippines), mais aussi dans les
estuaires et les mangroves, et même occasionnellement en mer : il
n'est donc pas strictement inféodé à l'eau douce. Tetraodon
nigroviridis appartient à la famille des poissons-ballons "lisses"
(Tetraodontidés), elle-même comprise dans l'ordre des
Tetraodontiformes, qui inclut aussi les diodons (poissons-ballons
"épineux"), les poissons-lunes, les poissons-coffres et les
balistes. Tetraodon nigroviridis est souvent confondu avec une
espèce très proche, Tetraodon fluviatilis. Le Genoscope a
recherché des marqueurs moléculaires capables de différencier les deux
espèces (accès à ces données et aux résultats
phylogénétiques). D'autres membres de la famille des
Tetraodontidés sont les fugus, poissons marins dont une espèce
(Takifugu rubripes) a fait elle aussi l'objet d'un projet de
séquençage (voir plus bas). Les lignées de Tetraodon
nigroviridis et Takifugu rubripes ont divergé il y a 18 à
30 millions d'années.
haut de page
Les poissons-ballons,
vertébrés au génome compact
L'intérêt pour les Tetraodontidés a été suscité en 1968, lorsque R. Hinegardner a révélé la très petite taille
de leurs génomes ; en particulier, cet auteur a montré que le génome
de Tetraodon, avec une taille grossièrement estimée à 380 Mb
(mesure du contenu en ADN des cellules), était le plus petit des 300
génomes de poissons téléostéens mesurés, et, par conséquent, le plus
petit génome de vertébré connu. En guise de comparaison, le
poisson-zèbre (Danio rerio), aujourd'hui utilisé comme
organisme modèle en génomique et en génétique, possède un génome de
1,6 milliard de paires de bases, quatre fois plus grand. Quant à
l'être humain, son génome de 3,2 milliards de paires de bases est huit
fois plus grand que celui de Tetraodon. Par la suite, Sydney Brenner et ses collègues à Cambridge ont
confirmé la petite taille du génome d'un autre poisson-ballon, le fugu
Takifugu rubripes: par une approche de séquençage aléatoire
partiel, ils ont estimé sa taille à 400 Mb environ. Ces premières
données de séquence ont par ailleurs confirmé l'hypothèse de la
compacité du génome des poissons-ballons: comme l'on retrouve chez
les poissons téléostéens la plupart des fonctions présentes chez les
autres vertébrés, il était raisonnable de supposer que poissons et
mammifères possèdent un répertoire à peu près comparable de gènes. On
s'attendait donc à ce que la petite taille du génome des
poissons-ballons soit due, non à une forte réduction du nombre de
gènes par rapport aux mammifères, mais à une réduction des séquences
non-codantes. Les premières séquences obtenues par Brenner en ont
apporté la confirmation: elles ont révélé la petite taille des
introns et des régions intergéniques du fugu, résultant de la rareté
des séquences répétées. C'est en ce sens que ce génome dense en exons
est dit "compact". La structure des gènes, quant à elle, apparaissait
conservée: dans les quelques cas étudiés, les introns étaient
retrouvés en des positions similaires dans un gène de Takifugu et dans
le gène orthologue chez l'homme. Une analyse
préliminaire du génome de Tetraodon nigroviridis, publiée
en 2000, a révélé la même rareté des séquences répétées.
haut de page
Hypothèses au sujet des génomes compacts
Comment expliquer cette compacité des génomes des poissons-ballons ?
L'analyse des séquences génomiques partielles de Tetraodon
nigroviridis et Takifugu rubripes a apporté quelques
éléments de réponse. Les éléments transposables, qui constituent la
majorité des séquences répétées, représentent 45% de la séquence du
génome humain, alors qu'ils sont très peu abondants chez les
poissons-ballons: ils représentent 3,8% de l'assemblage de la
séquence génomique de Tetraodon nigroviridis, et 2,7% de
l'assemblage du fugu. Ce sont les plus faibles valeurs connues parmi
les eucaryotes multicellulaires, même si l'abondance réelle des
éléments transposables chez les deux poissons est sans doute un peu
plus élevée: ils apparaissent en effet concentrés dans les régions
hétérochromatiques du génome de Tetraodon (Dasilva et al., 2002), qui sont
sous-représentées dans l'assemblage. S'ils sont rares, les éléments
transposables présentent toutefois une diversité importante chez
Tetraodon. Il est possible que les éléments transposables et
les autres séquences sans contrainte fonctionnelle aient un taux de
délétion plus élevé chez ces poissons, ce que semble confirmer le fait
que les pseudogènes soient éliminés plus rapidement chez
Tetraodon que chez l'homme. Un autre facteur à l'origine des génomes compacts des
Tetraodontidés serait une résistance aux grandes insertions propre à
cette lignée, comme semble l'indiquer une étude comparative avec des
diodons et un poisson-lune (Neafsey et Palumbi,
2003). La taille des génomes des poissons-ballons pourrait avoir
crû moins vite que dans les autres lignées de Tétraodontiformes, ou,
comme cela semble plus probable, avoir subi une réduction au cours de
l'évolution. Ces animaux constituent en tous cas un excellent modèle
pour la compréhension des facteurs qui déterminent l'évolution de la
taille des génomes.
haut de page
Le génome compact de Tetraodon nigroviridis, modèle pour l'étude génomique des vertébrés
Sydney Brenner fut le premier à formuler l'intérêt d'un génome compact
comme celui de Takifugu pour l'étude des autres génomes de vertébrés. Il
proposa dès 1993 de séquencer tout ou partie du génome du fugu pour
accéder à moindre coût au répertoire des gènes des vertébrés. En
séquençant une quantité d'ADN donnée chez un poisson-ballon, on a en
effet bien plus de chances de trouver un exon qu'en séquençant la même
quantité d'ADN chez un autre vertébré, en particulier chez un
mammifère comme l'homme. Un séquençage à une profondeur modeste suffit
donc pour avoir un premier aperçu du contenu en gènes d'un génome
compact. Qui plus est, la rareté des séquences répétées permet
d'envisager la réussite d'une stratégie de séquençage aléatoire
global, rapide et économique, mais inadaptée à un génome aussi vaste
et complexe que le génome humain.
Malgré ces arguments, le projet fugu n'a pu être mis en oeuvre
immédiatement. En 1997, il n'était toujours pas financé et sa
réalisation semblait peu probable. Le Genoscope a alors décidé
d'entreprendre le séquençage d'un autre poisson à génome compact afin
de disposer d'un "génome modèle" de vertébré. Le choix s'est porté sur
Tetraodon nigroviridis, car ce petit poisson présente
l'avantage d'être aisé à maintenir dans un aquarium d'eau douce et
d'une acquisition facile dans les circuits aquariophiles, alors que
Takifugu rupripes, pêché dans les eaux côtières de l'archipel
nippon et de la Chine, est plus difficile à importer. Il faudrait en
outre de grands bacs d'eau de mer pour maintenir ce fugu qui peut
atteindre plusieurs kilogrammes. Tetraodon nigroviridis est
donc plus adapté à des analyses moléculaires pour lesquels le matériel
biologique doit être d'accès simple et constant (Crnogorac-Jurcevic et al., 1997).
En 2000, suite aux premières publications du Genoscope sur les
séquences génomiques de Tetraodon, l'impact du séquençage d'un
génome compact sur l'analyse du génome humain était démontré. C'est à
cette époque que le projet de
séquençage de Takifugu rubripes a démarré. Il a abouti
en 2002 à la publication d'une ébauche de la
séquence du génome (45 000 contigs assemblés en plus de 12 000
échaffaudages couvrant 332,5 Mb, pour une taille totale du génome
estimée à 365 Mb) (Aparicio et al.,
2002). La comparaison des protéines prédites dans la séquence du
fugu avec les protéines humaines a livré des correspondances fortes
pour trois quarts de ces dernières, ce qui valide l'hypothèse initiale
d'un répertoire comparable de gènes chez tous les vertébrés.
Les projets Tetraodon et fugu sont moins redondants qu'ils le
paraissent. La comparaison des séquences génomiques de deux
poissons-ballons distants de 18 à 30 millions d'années permet
d'améliorer l'annotation de part et d'autre, ce qui renforce l'utilité
de ces génomes modèles.
haut de page
Exofish, un outil de génomique comparative
Toutefois, l'objectif principal du séquençage du génome de
Tetraodon, au début du projet, était de pouvoir comparer sa
séquence avec celle du génome humain afin d'y faciliter
l'identification des gènes. Cette approche de génomique comparative
est fondée sur une hypothèse simple: au cours des 400 millions
d'années écoulées depuis la séparation des lignées de Tetraodon
et de l'être humain, les régions du génome contraintes par leur
fonction - en premier lieu les séquences codantes - ont accumulé moins
de mutations, et ont donc divergé moins vite que les autres. La
distance évolutive qui nous sépare de ce poisson est suffisamment
grande pour que les séquences des introns et des régions intergéniques
aient complètement divergé, mais elle reste assez faible pour que la
majorité des séquences codantes aient été conservées sur au moins une
partie de leur longueur. Ce contraste permet donc de les identifier
par des comparaisons à l'échelle du génome entier (un usage du génome
différent de celui retenu plusieurs années après dans le projet
Takifugu, où la comparaison homme-poisson a été limitée aux
gènes prédits).
Le Genoscope a développé à cette fin un outil de génomique comparative
nommé Exofish (pour EXOn FInding by Sequence Homology), fondé
sur l'algorithme BLAST (A propos
d'Exofish). La comparaison par Exofish
entre les séquences génomiques du poisson et la séquence du génome
humain prise pour cible livre des Ecores (Evolutionary COnserved
REgions), alignements des séquences de Tetraodon au niveau
de régions conservées dans le génome humain. Un calibrage permet de
définir les paramètres pour optimiser la spécificité (conditions
telles qu'aucune ecore ne soit obtenue dans les introns de gènes
humains connus) sans nuire à la sensibilité (fraction d'exons humains
détectés).
haut de page
Une estimation du nombre
des gènes humains par Exofish
Exofish a été utilisé pour la première fois en 2000, alors que seuls
33% de la séquence génomique de Tetraodon et 42% de la séquence
du génome humain avaient été déterminés. Le but de cette comparaison
était d'évaluer le nombre des gènes humains, pour lequel des valeurs
très différentes étaient alors avancées. Le principe de l'évaluation
était simple: le nombre d'ecores obtenues sur la séquence partielle
du génome humain a été extrapolé à l'ensemble du génome, puis
divisé par le nombre moyen d'ecores par gène (mesuré sur un jeu de
gènes humains de référence). Ce calcul a permis d'estimer que le
génome humain contient 28 000 à 34 000 gènes (voir le communiqué
de presse). Ce résultat, publié en 2000 (Roest Crollius et al., 2000),
s'accordait avec celui d'une étude parue en même temps, et qui
reposait sur un principe différent (B. Ewing &
P. Green, 2000). En revanche, il était très inférieur aux
estimations qui avaient alors cours: on supposait depuis longtemps
l'existence de 50 000 à 90 000 gènes humains, et certains prétendaient
même que notre génome contenait plus de 200 000 gènes! Cette révision
à la baisse a surpris, car elle accordait à l'être humain à peine plus
du double du nombre des gènes de la drosophile. Depuis l'achèvement du
séquençage du génome humain en avril 2003, elle a été confortée par
les progrès de l'annotation : des procédures d'annotation automatiques
telles que Ensembl, Twinscan ou SGP2 identifient entre 22 000 et
43 000 gènes humains.
Courant 2003, le Genoscope a profité de la disponibilité d'une
séquence complète à 99% du génome humain, et d'un assemblage couvrant
90% de la séquence génomique de Tetraodon (voir plus bas), pour
procéder à une nouvelle évaluation du nombre de gènes humains par
Exofish. Le nombre moyen d'ecores par gène est cette fois mesuré à
partir des ecores obtenues sur cinq chromosomes humains "finis" (les
chromosomes 6, 13, 14, 20 et 22), dont l'annotation a été validée par
des experts humains. Du nombre d'ecores obtenues sur l'ensemble de la
séquence du génome humain est alors déduite une première valeur du
nombre total de gènes, corrigée pour la fractions des ecores qui
détectent des pseudogènes. Ce calcul aboutit à une fourchette de 22
500 à 29 500 gènes humains, en bon accord avec les résultats
d'annotation indiqués plus haut (Jaillon et
al., 2004).
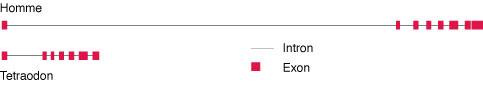
Comparaison du gène humain SPAG7, codant une protéine du sperme,
et du gène orthologue chez Tetraodon nigroviridis. Le gène du
poisson est environ huit fois plus petit, mais possède la même
structure en exons. La différence de taille réside au niveau des
introns, et notamment du premier, qui mesure 6867 pb chez l'homme et
628 pb chez le poisson. La réduction des séquences intergéniques
contribue également au génome compact de
Tetraodon. |
Les ecores obtenues par la comparaison homme-Tetraodon
(accessibles sur le navigateur Comparative
Genoscope) ont été utilisées dans la procédure d'annotation de plusieurs
chromosomes humains publiés à ce jour (début 2004). Malgré ces
efforts, près de 15 000 ecores étaient encore retrouvées, au printemps
2004, en dehors de toute annotation (gène ou pseudogène) sur la
séquence du génome humain. Elles ont servi à définir 904 nouveaux modèles de gènes humains, à la
lumière des modèles de gènes correspondant à ces ecores chez
Tetraodon. Ces nouveaux gènes putatifs, dont la petite taille
explique qu'ils n'aient pas été détectés, sont confirmés à plus de 60%
par des données d'expression.
En comparant par Exofish les séquences génomiques de Tetraodon
avec celles d'autres mammifères tels que le rat et la souris, on
retrouve les ecores détectées dans le génome humain. Inversement, les
ecores issues de la comparaison des génomes de l'homme, de la souris
et de Takifugu avec celui de Tetraodon ont servi à
l'identification des gènes du petit poisson (voir la procédure
d'annotation dans la page "Projet de séquençage").
haut de page
Historique du projet de séquençage
Le projet de séquençage de Tetraodon nigroviridis a démarré fin
1997 au Genoscope. Il s'agit donc d'un projet propre qui a été défini
et mis en oeuvre dès la mise en route du centre. A cette époque, le
seul génome de vertébré dont la séquence complète était attendue était
le génome humain: le projet de séquençage du génome de la souris n'a
été lancé qu'en 1999, et le projet de séquençage de Takifugu
rubripes a démarré fin 2000. Le choix de séquencer le génome de
Tetraodon nigroviridis, un poisson à génome compact plus
commode à maintenir en captivité que Takifugu, était donc
initialement motivé par l'obtention rapide d'un outil de génomique
comparative pour l'exploration du génome humain. Les données de
séquence produites dans cette première phase de séquençage aléatoire
global (0,3 équivalent génomique) ont pu ainsi être utilisées avec
succès, début 2000, dans une comparaison à grande échelle avec la
séquence du génome humain qui a indiqué l'existence d'environ 30 000
gènes humains (voir la partie précédente). Parallèlement à cette
approche de séquençage aléatoire, des régions présentant un intérêt
particulier (gènes du système immunitaire) ont été
intégralement séquencées au Genoscope après sélection des inserts
génomiques correspondants dans des clones BAC.
Le projet s'est ensuite orienté vers la production d'une séquence
aussi complète que possible du génome de Tetraodon, en
poursuivant le séquençage aléatoire global jusqu'à une profondeur
élevée. Les nouveaux objectifs - l'analyse détaillée du protéome de
Tetraodon, de l'organisation de son génome et des régions
synténiques avec les autres génomes de vertébrés - requerraient en
effet un assemblage de bonne qualité. En juin 2001, le Genoscope a été
rejoint par le Whitehead
Institute Center for Genome Research (aujourd'hui Broad Institute of
MIT and Harvard). Près de la moitié des lectures ont alors été
prises en charge par ce centre, ce qui a permis d'accélérer
considérablement le projet. A la fin de l'année 2001 avaient ainsi été
produits 6 équivalents génome (2,3 Gb de séquence brute), à parts
égales par chaque centre (lire le communiqué
de presse). Cette quantité de séquence était suffisante pour un
premier essai d'assemblage au Genoscope (70% du génome couverts par
une centaine de milliers de contigs). Deux équivalents génome
supplémentaires ont alors été produits par le Genoscope.
Au final, ce sont 8,3 équivalents génome qui ont été produits et
assemblés en 2002. L'ébauche résultante (près de 50 000 contigs reliés
en plus de 25 000 supercontigs, ou échafaudages) couvre 90% des
régions euchromatiques de Tetraodon et présente une meilleure
contiguïté à grande échelle que l'ébauche génomique de
Takifugu. Grâce à l'utilisation de données de
cartographie physique, 39 "ultracontigs", représentent 64% de la
séquence assemblée, ont pu être ancrés sur les 21 chromosomes de
Tetraodon (voir leur
répartition sur le caryotype). C'est la première fois que l'on
dispose d'une vue d'ensemble de l'organisation d'un génome de poisson
à l'échelle chromosomique. L'annotation de la séquence de l'ébauche,
menée au Genoscope, a livré 27 918 modèles de gènes. Pour plus de
détails sur l'assemblage et l'annotation, on se reportera à la page projet de séquençage, ainsi qu'à l'article paru en octobre 2004 dans la
revue Nature(Jaillon et al.,2004).
haut de page
Paysage génomique de
Tetraodon
L'un des premiers enseignements de l'ébauche de la séquence génomique
de Tetraodon a été la confirmation de la petite taille de ce
génome. Les 26 000 échafaudages qui forment l'assemblage couvrent
342 Mb (trous compris). Les 312 Mb de séquence qu'ils contiennent
représentent 90% de l'euchromatine de Tetraodon (pourcentage
mesuré avec un jeu de lectures aléatoires), laquelle peut donc être
évaluée à 346 Mb.
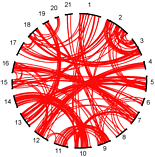
Répartition globale des gènes dupliqués dans les 21
chromosomes de Tetraodon. Les lignes courbes joignent deux gènes issus d'une
duplication. Les gènes présents sur un meme segment chromosomique ont
tendance à posséder des copies dupliquées sur un seul autre chromosome.
Cela est particulièrement net entre les chromosomes 9 et 11 |
Quant à la taille totale des 21 chromosomes qui constituent ce génome,
elle a été estimée par cytométrie de flux dans une fourchette de 329 à
356 Mb. Les régions hétérochromatiques apparaissent donc limitées.
Cette compaction extrême explique que le pourcentage en paires de
bases G+C (GC%) du génome de Tetraodon soit plus élevé que ceux
des grands génomes de mammifères. Cette grandeur est en effet corrélée
positivement à la densité en gènes chez les vertébrés. Toutefois, la
distribution du GC% présente la même forme en cloche asymétrique -
indicatrice d'une répartition non homogène des gènes - que celles de
l'homme et de la souris: elle est simplement décalée vers les valeurs
les plus élevées. Chez Takifugu rubripes, en revanche, la
distribution du GC% est homogène. Cette différence frappante entre les
génomes de deux espèces aussi proches s'explique peut être par un
défaut de séquençage ou d'assemblage d'une fraction riche en (G+C) du
génome de Takifugu.
La séquence génomique a aussi permis d'étudier en détail la diversité
et l'abondance des éléments transposables chez Tetraodon. Comme
attendu, ils sont rares dans ce génome compact: environ 4 000
copies détectées dans les séquences non assemblées, soit au moins 3,8%
du génome. Toutefois, ils sont aussi très divers: 75
séquences consensus (voir Tableau 3) ont pu être reconstituées (53
éléments de classe I et 22 éléments de classe II représentant une
grande variété de familles), alors qu'une vingtaine de types seulement
ont pu être définis à partir des millions de copies présentes dans les
génomes de l'homme et de la souris. Certaines familles semblent encore
actives. Pour expliquer la rareté record des éléments transposables
chez Tetraodon, il faut donc supposer qu'ils subissent un taux
de délétion particulièrement élevé. Les éléments transposables se
concentrent dans des régions hétérochromatiques, en particulier les
bras courts de petits chromosomes. Dans les régions euchromatiques, on
constate une présence préférentielle des SINE (short interspersed
elements) dans les régions riches en (A+T), et des LINE (long
interspersed elements) dans les régions riches en (G+C), soit
l'inverse de ce que l'on observe chez les mammifères.
haut de page
Répertoire des gènes de
Tetraodon
L'annotation de la séquence génomique de Tetraodon a permis de
définir 27 918 modèles de gènes codant des protéines. Ce nombre
est du même ordre que celui des gènes humains. A une échelle très
globale, les résultats de l'analyse Exofish (voir plus haut)
confirment ce résultat. Nous avons comparé les séquences génomiques de
quatre vertébrés (Takifugu, Tetraodon, souris et humain)
- chacune étant prise à tour de rôle comme séquence cible -,
et obtenu pour les quatre génomes un nombre similaire de régions
conservées au cours de l'évolution (ecores). Or ces ecores peuvent
correspondre aussi bien à des gènes qu'à des pseudogènes, et l'on sait
que ces derniers sont beaucoup moins abondants chez Tetraodon
et Takifugu que chez les mammifères. Cela implique donc que les
poissons possèdent légèrement plus de gènes effectivement codants que
les mammifères.
Les gènes représentent 40% du génome de Tetraodon. On trouve
6,9 exons codants par gène en moyenne, et la distribution de la taille
des exons est similaire à celle que l'on observe chez l'homme. En
revanche, la distribution de la taille des introns est nettement
différente. La limite inférieure de taille des introns est la même
chez les deux vertébrés (entre 50 et 60 pb), mais on trouve beaucoup
plus d'introns approchant cette limite chez Tetraodon que chez
l?homme. Ce phénomène ne concerne toutefois qu'une sous-population de
gènes de Tetraodon. Il reste à comprendre pourquoi certains
gènes ont subi cette évolution vers la réduction de leurs introns,
alors que d'autres ne semblent pas affectés.
Un effort particulier a été consenti pour des gènes posant des
problèmes d'annotation (voir la page "Projet
de séquençage"). C'est notamment le cas des gènes codant les
cytokines de type I et leurs récepteurs, dont les séquences sont peu
conservées parmi les vertébrés. Aucun n'avait été retrouvé dans le
génome de Takifugu, et l'on pouvait dès lors se demander si
cette grande famille de gènes, qui inclut des hormones et des
interleukines, est absente chez les poissons. Dans le génome de
Tetraodon, au contraire, nous avons découvert 39 gènes qui
appartiennent à toutes les familles trouvées chez les mammifères. La
comparaison avec ces derniers indique que, depuis le dernier ancêtre
commun à Tetraodon et aux mammifères, la diversification a
surtout opéré sur les systèmes hormonaux (hormones de croissance et
prolactine) dans la lignée des Actinoptérygiens (poissons à nageoires
rayonnées), tandis qu'elle concernait davantage les interleukines dans
la lignée des mammifères.
La comparaison globale entre le protéome de Tetraodon et ceux
des autres vertébrés séquencés (Takifugu, humain, souris) ainsi
que de l'ascidie Ciona intestinalis (invertébré cordé) procure
quelques enseignements. L'analyse des domaines protéiques par InterPro
révèle peu de différences entre poissons et mammifères. On note
toutefois que:
- les molécules de collagène sont bien plus diverses chez les poissons que chez les mammifères.
- certains domaines associés au transport du sodium sont
davantage présents chez les deux poissons et chez Ciona, ce
qui reflète sans doute le fait qu'ils vivent en eau salée.
- les nucléosidases spécifiques des purines sont elles aussi
plus abondantes chez les poissons.
- les répresseurs transcriptionnels à boîte KRAB, dont on trouve
plusieurs centaines chez les mammifères, sont totalement absents
chez les poissons.
Si l'on considère à présent les classifications dans "Gene Ontology"
pour comparer les fréquences des diverses catégories fonctionnelles,
on constate de nouveau peu de différences. Les deux poissons et
Ciona ont tendance à différer ensemble des mammifères; ils
présentent une plus grande fréquence des fonctions enzymatiques et de
transport, et une plus faible fréquence des protéines impliquées dans
la transduction du signal et des protéines structurales.
haut de page
Aspects évolutifs (1): taux
d'évolution neutre et taux d'évolution de l'ADN codant
La disponibilité des séquences des génomes de l'homme et de la souris
d'une part, de Takifugu et de Tetraodon d'autre part,
offre des opportunités nouvelles pour l'étude de l'évolution des
vertébrés. Nous nous sommes intéressés en premier lieu à la vitesse
avec laquelle ces séquences ont divergé au cours de l'évolution, au
niveau de l'ADN sans contrainte fonctionnelle.
Pour étudier le taux d'évolution neutre entre deux lignées de
vertébrés aussi distantes que les poissons téléostéens et les
mammifères, il n'était pas possible d'identifier des séquences
répétées ancestrales, comme entre l'homme et la souris. Aussi avons
nous examiné les positions libres de muter au sein des gènes hérités
en commun par les quatre espèces. La première étape a donc consisté à
définir un ensemble de 5 802 quadruplets de gènes
orthologues. Nous avons ensuite étudié, au sein de ces orthologues,
les troisièmes positions de certains codons, dites "quatre fois
dégénérées", car elles peuvent être substituées par n'importe lequel
des quatre nucléotides sans que cela change la nature de l'acide aminé
codé. Cette étude a confirmé le taux d'évolution neutre mesuré
précédemment sur un plus petit nombre d'orthologues entre l'homme et
la souris; elle a en outre révélé que le taux d'évolution neutre entre
les deux poissons est 2,5 fois plus élevé qu'entre les deux
mammifères.
Nous nous sommes ensuite intéressés au taux de divergence des
séquences protéiques, en comparant les séquences du même ensemble
d'orthologues. La similarité moyenne est moins grande entre les
protéines orthologues de Takifugu et de Tetraodon
qu'entre les protéines de l'homme et de la souris; or les lignées des
deux poissons se sont séparées depuis moins longtemps que celles des
deux mammifères. Les séquences protéiques divergeraient donc plus vite
chez les poissons, comme cela avait déjà été observé à partir d'un
petit nombre de gènes. La comparaison avec un proche parent des
vertébrés - l'ascidie Ciona intestinalis - confirme
ce résultat: la fréquence des mutations qui substituent un acide aminé
par un autre (Ka) est en moyenne plus élevée entre Ciona et
Tetraodon qu'entre Ciona et l'homme. En outre, le
rapport entre substitutions non synonymes (Ka) et substitutions
synonymes (Ks) est lui aussi plus élevé entre les deux poissons
qu'entre les deux mammifères. Depuis le dernier ancêtre commun aux
poissons-ballons et aux mammifères, l'évolution se serait donc
accélérée dans la lignée des premiers, ou bien ralentie dans la lignée
des seconds.
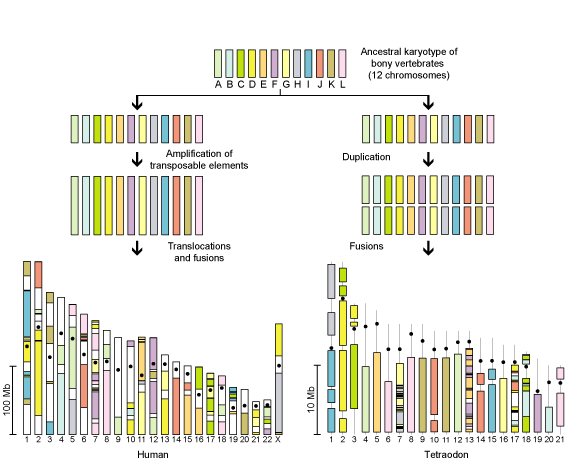
Modèle pour le passage du caryotype du dernier ancêtre commun des
vertébrés osseux (12 chromosomes ancestraux) à ceux de l'homme et de
Tetraodon |
haut de page
Aspects évolutifs (2):
duplication du génome
Des études récentes ont accrédité l'hypothèse d'une duplication de
l'ensemble du génome propre à la lignée des poissons à nageoires
rayonnées. Une telle duplication, suivie d'une perte massive de gènes,
a déjà été démontrée chez les levures. Il pourrait s'agir d'un
mécanisme très important dans l'évolution des génomes eucaryotes. Nous
avons donc recherché la trace d'un tel événement dans le génome de
Tetraodon. La séquence génomique de Tetraodon présente
un avantage unique pour une telle recherche: il s'agit du premier
génome de poisson pour lequel on dispose d'un assemblage en grande
partie ancré sur les chromosomes. Pour la première fois, on peut donc
étudier la distribution des gènes dupliqués à une échelle globale,
dans le but de trancher entre l'hypothèse d'un passage soudain à
l'état tétraploïde et celle d'une série d'événements de duplication
discrets.
Nous avons ainsi identifié plus de 1 000 paires de gènes dupliqués chez
Tetraodon, et près de 1 000 chez Takifugu. Près de 75%
des événements de duplication apparaissent antérieurs à la séparation
des lignées de Takifugu et de Tetraodon. La distribution
de ces anciens gènes dupliqués est frappante: les copies des gènes
présents sur un même segment chromosomique sont presque toutes
présentes sur un seul autre chromosome, et cette organisation est
retrouvée sur l'ensemble des chromosomes. La façon la plus simple de
l'expliquer est de supposer la duplication de tout le génome en un
seul événement. La conservation d'une telle organisation tétraploïde
au cours des centaines de millions d'années écoulées depuis la
duplication serait due à la forte densité en gènes du génome de
Tetraodon: les réarrangements chromosomiques y seraient plus
fréquemment défavorables que chez les mammifères, car ils
interféreraient plus fréquemment avec l'expression des gènes.
haut de page
Aspects évolutifs (3):
synténie entre les génomes de Tetraodon et des
mammifères
L'étude de la distribution des gènes orthologues entre le génome de
Tetraodon et ceux de l'homme et de la souris a apporté la
démonstration définitive de la duplication ancestrale du génome, et
clot ainsi la controverse à ce sujet. Là encore, l'ancrage d'une
grande part de la séquence de Tetraodon sur les chromosomes a
constitué un avantage majeur: il a permis de réaliser la première
carte de synténie à haute résolution entre poissons et mammifères. A
partir de 6 684 gènes de Tetraodon de position
chromosomique connue qui possèdent un orthologue dans le génome
humain, nous avons défini 900 groupes de synténie (groupe d'au moins
deux gènes contigus dont les orthologues sont situés sur un même
chromosome humain). De même, 6 831 gènes orthologues avec un gène
de souris ont été organisés en 1 014 groupes de synténie. Le fait
que les groupes de synténie soient plus nombreux avec la souris
qu'avec l'homme confirme la plus grande fréquence des réarrangements
chromosomiques chez les rongeurs.
haut de page
Aspects évolutifs (4): le
génome du vertébré ancestral
Nous avons tiré parti de cette synténie pour reconstituer
l'organisation ancestrale du génome, au moment de la divergence de la
lignée des poissons à nageoires rayonnées. Après la duplication de ce
génome ancestral, les copies surnuméraires des gènes ont du être
perdues indifféremment sur l'un ou l'autre des chromosomes de chaque
paire issue de la duplication. On s'attend donc à ce que les gènes de
chaque chromosome ancestral soient retrouvés sur deux
chromosomes. L'étude des relations de synténie avec le génome humain
confirme effectivement cette distribution binaire: les orthologues des
gènes d'une même région chromosomique chez l'homme sont bien retrouvés
pour la plupart sur deux chromosomes différents de
Tetraodon. Il s'agit d'une démonstration indépendante de la
duplication du génome entier, mais aussi d'un moyen bien plus puissant
que l'étude des gènes dupliqués pour délimiter les segments
chromosomiques dupliqués, et reconstituer les événements de fusion et
de fragmentation. Nous proposons ainsi l'existence de 12 chromosomes
dans le génome ancestral. Ce résultat est en accord avec la valeur
modale du nombre haploïde de chromosomes dans les génomes des
Téléostéens actuels, qui est de 24. Les 24 chromosomes issus de la
duplication dans la lignée des Téléostéens auraient subi 5 fusions, 3
translocations et 2 fragmentations pour donner les 21 chromosomes du
génome de Tetraodon.
Dans la lignée conduisant à l'homme, en revanche, les réarrangements
interchromosomiques entre les 12 chromosomes ancestraux ont été plus
nombreux. Cela reflète l'augmentation considérable du nombre de
séquences répétées dans cette lignée. Dans les génomes ainsi "dilatés"
et moins denses en gènes, les réarrangements ont pu survenir avec des
conséquences moins délétères. L'on peut en outre évaluer l'ancienneté
relative de ces événements: les gènes présents sur deux blocs
ancestraux anciennement fusionnés auront été brassés et répartis de
façon homogène sur toute la longueur du nouveau chromosome par des
réarrangements intrachromosomiques; en revanche, les gènes de blocs
récemment fusionnés apparaitront plus nettement ségrégés. On retrouve
ainsi, par exemple, la fusion récente qui a abouti au chromosome 2
humain, à partir de deux chromosomes restés distincts chez le
chimpanzé. Le séquençage prochain d'autres génomes, ceux d'autres
vertébrés ou de l'amphioxus, plus proche parent actuel des vertébrés,
permettra d'éclaircir davantage l'histoire de cette mosaïque
chromosomique.
haut de page
Le séquençage du génome de Tetraodon nigroviridis est un projet propre du Genoscope.
En 2001, le Whitehead Institute Centre for Genome Research (WICGR), aujourd'hui
Broad Institute of MIT and Harvard s'est joint au projet et a produit un peu moins de la
moitié des lectures. L'étape d'assemblage a également été conduite en collaboration avec le
WICGR. Plusieurs autres groupes ont collaboré à l'analyse et à l'annotation de la séquence génomique de
Tetraodon nigroviridis :
- Laboratoire de
Biologie Moléculaire de la Cellule, CNRS UMR 5161, INRA UMR 1237,
Ecole Normale Supérieure de Lyon ;
- Service de
Systématique Moléculaire, CNRS IFR 101, dans le Département
Systématique et Evolution du Muséum National d'Histoire Naturelle,
Paris ;
-
Défenses Antivirales et Antitumorales, CNRS UMR 5124, Montpellier ;
-
Grup de Recerca d'Informàtica Biomèdica, IMIM-UPF et
Programa de Bioinformàtica i Genòmica à Barcelone ;
-
Biométrie et Biologie Evolutive, CNRS UMR 5558, Université Lyon 1 ;
-
Laboratoire des Interactions Plantes-Microorganismes, INRA UMR 441,
CNRS UMR 2594, Toulouse ;
- Agencourt,
Massachusetts, Etats-Unis ;
-
Groupe "Evolutionary Fish Genomics", Biozentrum, Université de Würzburg, Allemagne.
Bibliographie
- R. Hinegardner, Am. Nat. (1968) 102, 517-563.
- S. Brenner et al., Nature (1993) 366, 265-268.
- T. Crnogorac-Jurcevic et al., Genomics (1997) 41, 177-184.
- B. Ewing & P. Green, Nature Genet. (2000) 25, 232-234.
- S. Aparicio et al., Science (2002) 297, 1301-1310.
- K.L. Howe et al., Genome Res. (2002) 12, 1418-1427.
- D.E. Neafsey et S.R. Palumbi, Genome Res. (2003) 13, 821-830.
Les articles sur Tetraodon issus des travaux du Genoscope et de ses collaborateurs
- H. Roest Crollius et al., Characterization and repeat analysis of the compact genome of the freshwater pufferfish Tetraodon nigroviridis. Genome Res. (2000) 10, 939-949.
- H. Roest Crollius et al., Human gene number estimate provided by genome wide analysis using Tetradon nigroviridis genomic DNA, Nature Genet. (2000) 25, 235-238.
- C. Dasilva et al., Remarkable compartimentalization of transposable elements and pseudogenes in the heterochromatine of the Tetraodon nigroviridis genome. Proc. Natl. Acad. Sci. USA (2002) 99, 13636-13641.
- F. Grützner et al., Four-hundred million years of conserved synteny of human Xp and Xq genes on three Tetraodon chromosomes. Genome Res. (2002) 12, 1316-1322.
- L. Bouneau et al., An active non-LTR retrotransposon with tandem structure in the compact genome of the pufferfish Tetraodon nigroviridis. Genome Res. (2003) 13, 1686-95.
- G. Lutfalla et al., Comparative genomic analysis reveals independant expansion of a lineage-specific gene family in vertebrates: the class II cytokine receptors and their ligands in mammals and fish. BMC Genomics (2003) 4, 29.
- J.N. Volff et al., Diversity of retrotransposable elements in compact pufferfish genomes. Trends Genet. (2003) 19, 674-678.
- O. Jaillon et al., Genome
duplication in the teleost fish Tetraodon nigroviridis reveals the early vertebrate proto-karyotype. Nature (2004) 431, 946-957.
|
|
|



 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

