| -> Accès au projet de séquençage |
|
Collaboration
 Physiologische Chemie I, Biozentrum,
Université de Würzburg
Würzburg, Allemagne.- Service de Systématique Moléculaire
Département Systématique et Evolution
Museum
National d'Histoire Naturelle, CNRS IFR 101
Paris, France.
|
|
|
|
Introduction
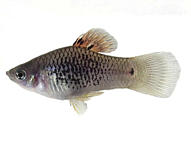
Le platy Xiphophorus maculatus (photo: Manfred Schartl, Würzburg) |
Xiphophorus est un petit poisson d'eau douce
appartenant à la famille des Poécilidés comme le guppy Poecilia
reticulata et le molly Poecilia latipinna. Le nom
Xiphophorus est dérivé du Grec xiphos (épée) et phoros
(porteur). Le genre Xiphophorus regroupe 23 espèces
originaires d'Amérique Centrale (Mexique, Belize, Guatemala et
Honduras) qui sont classées en porte-épées du nord, porte-épées du sud
et platys.
Xiphophorus est ovovivipare, avec un mode de fécondation
interne. Les oeufs se développent dans le corps de la femelle, qui met
au monde des alevins déjà formés dont elle est elle-même très
friande. Xiphophorus est bien connu du grand public (sa définition selon Pierre Desproges) et très
prisé des aquariophiles.
Mélanomes héréditaires et gènes du cancer chez Xiphophorus
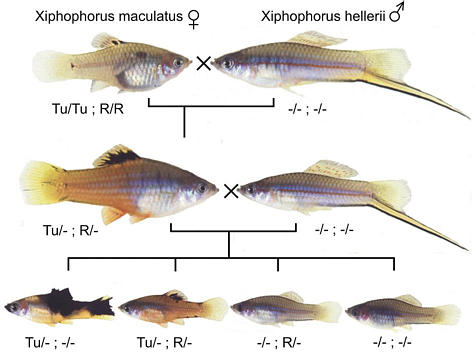
Fig2.: Schéma de croisement présentant la ségrégation des loci Tu (locus inducteur de tumeur) et R (locus suppresseur de tumeur) chez certains hybrides interspécifiques du genre Xiphophorus. Dans ce croisement, appelé le modèle de Gordon-Kosswig, un platy X. maculatus est croisé avec un porte-épée X. hellerii |
Les mélanomes comptent parmi les formes de cancer les plus agressives
chez l'homme. Dans les années 1920, des scientifiques allemands et
américains ont découvert qu'il était possible d'induire la formation
de mélanomes chez le poisson Xiphophorus par simple
croisement entre deux espèces, par exemple le platy
X. maculatus le porte-épée X. hellerii
(Fig. 2).
Dans ce modèle, l'induction des tumeurs ne nécessite aucun
traitement génotoxique exogène (comme par exemple les rayons
ultraviolets). Les mélanomes de Xiphophorus sont dérivés d'un
type particulier de cellules pigmentaires à mélanine appelées les
macromélanophores. Depuis près de 80 ans, Xiphophorus est un
model animal classique pour l'étude des cancers héréditaires.
Chez Xiphophorus, le développement des mélanomes est induit
par l'abolition de la répression du locus oncogène dominant Tu
(tumeur) par le locus suppresseur de tumeur R (régulateur). Ces deux
loci sont présents chez le platy mais absents du porte-épée. La
présence de R et Tu sur des chromosomes différents dans le génome du
platy permet leur séparation par croisement (Fig. 2).
Après croisement entre X. maculatus et X. hellerii,
la descendance F1 est hétérozygote pour la présence de R et Tu. Un
croisement supplémentaire des individus F1 avec X. hellerii
produit 25% d'individus hétérozygotes pour Tu mais n'ayant plus aucune
copie du locus suppresseur R. Chez ces poissons, l'activité
oncogénique de Tu est fortement induite dans les
macromélanophores. Cette activation a pour conséquence la formation de
mélanomes malins très invasifs, qui entraînent généralement la mort du
poisson.
Xmrk, le gène localisé au locus Tu et responsable de la formation des
tumeurs, code pour un récepteur d'hormone appartenant à la famille du
récepteur du facteur de croissance épidermique Egfr (epidermal growth
factor receptor, récepteur tyrosine kinase) (Wittbrodt et al. 1989,
Nature 341:415). L'oncogène Xmrk a été formé chez Xiphophorus par
duplication récente du proto-oncogène egfrb, l'un des deux gènes egfr
chez les poissons (Adam et al. 1993, Science 259:816). Par
rapport à son ancêtre proto-oncogène, Xmrk a acquis un nouveau
contrôle transcriptionnel et subi des mutations conférant au récepteur
une activité constitutive indépendante du ligand. Xmrk et egfrb sont
localisés de part et d'autre du gène maître de déterminisme du sexe du
platy sur les chromosomes sexuels X et Y. Bien que Xmrk soit
potentiellement délétère, non essentiel et localisé dans une région
très instable du génome, ce gène a été conservé fonctionnel dans des
espèces divergente de Xiphophorus pendant une période de plusieurs
millions d'années d'évolution. Ceci suggère que Xmrk a une fonction
bénéfique dans certaines conditions naturelles. L'identification de
cette fonction représente un challenge majeur pour la recherche future
sur le modèle Xiphophorus.
Un autre locus important pour la formation des mélanomes, appelé Mdl
(pour "macromelanophore-determining locus"), est également localisé
sur les chromosomes sexuels du platy. Ce locus est nécessaire pour la
formation des macromélanophores, qui sont les précurseurs cellulaires
des mélanomes et produisent des patrons de pigmentation extrêmement
polymorphes chez Xiphophorus. Mdl détermine non seulement le phénotype
de la pigmentation des macromélanophores mais aussi la localisation,
le moment d'apparition et le degré de malignité des mélanomes. Mdl est
très proche de Xmrk mais n'a pas encore été identifié au niveau
moléculaire.
Evolution du déterminisme du sexe chez les vertébrés: le modèle Xiphophorus
La base moléculaire du déterminisme du sexe et de la différenciation
des gonades reste mal comprise chez les vertébrés non mammifères, et
même chez l'homme des membres importants de la cascade de déterminisme
du sexe restent à découvrir. SRY, Le gène maître de déterminisme du
sexe localisé sur le chromosome Y de l'homme et de la souris, a été
formé pendant l'évolution des mammifères et est absent des autres
lignées majeures de vertébrés. Depuis sa formation, le chromosome Y
des mammifères est engagé dans un processus de perte de gènes qui
pourrait entraîner sa disparition dans quelques millions d'années, ce
qui pourrait signifier la fin de l'espèce Homo sapiens. L'analyse du
déterminisme du sexe chez les vertébrés non mammifères pourrait
aboutir à l'identification de mécanismes alternatifs capables de
compenser la disparition du système SRY chez les mammifères.
Les poissons représentent un modèle de choix pour l'étude du
déterminisme du sexe. Ces animaux ont développé une incroyable
diversité de stratégies génétiques et environnementales pour
l'établissement du dimorphisme sexuel. Hétérogaméties mâles et
femelles avec possible influence de loci autosomaux ont été décrites
chez différentes espèces de poissons, de même que des systèmes
génétiques plus compliqués impliquant par exemple plusieurs paires de
chromosomes sexuels. De plus, le déterminisme du sexe chez les
poissons est fréquemment sous l'influence de facteurs environnementaux
comme la température ou le pH de l'eau, et une inversion du sexe
phénotypique est généralement possible soit spontanément soit par
traitement avec des hormones stéroïdes. Peu de données sont
actuellement disponibles concernant les mécanismes moléculaires et
évolutifs gouvernant la variabilité du déterminisme du sexe chez
poissons ; cette variabilité pourrait jouer un rôle important dans les
processus de spéciation.
Le sexage moléculaire et le contrôle du déterminisme du sexe sont des
enjeux économiques majeurs pour l'aquaculture. Les cultures monosexes
(élevage de populations soit entièrement mâles, soit entièrement
femelles) sont généralement utilisées en pisciculture pour le contrôle
de la reproduction des animaux et l'exploitation de certaines qualités
sexe-spécifiques concernant par exemple la croissance, la qualité de
la chair ou le comportement des espèces cultivées. De telles
populations monosexes peuvent être créées par traitement de l'un des
parents par des hormones oestrogènes ou androgènes (inversion du sexe
phénotypique). Le développement de tests moléculaires de sexage est
important pour la sélection de reproducteurs de génotype adéquat pour
la production de cultures monosexes de même que pour l'analyse rapide
des produits de croisement, d'androgenèse et de gynogenèse.
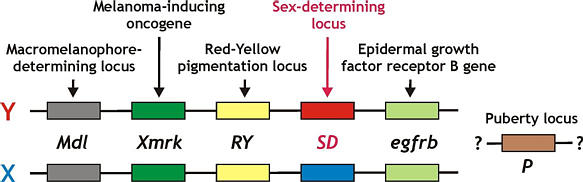
Fig3.: Gènes et loci liés au gène maître de déterminisme du sexe SD sur les chromosomes sexuels X et Y du platy Xiphophorus maculatus. |
Peu de données sont actuellement disponibles concernant les mécanismes
de déterminisme du sexe chez la plupart des espèces de poissons. Aucun
marqueur lié au sexe n'a pu être identifié chez le poisson zèbre
Danio rerio et les poissons ballons Takifugu
rubripes (Fugu) et Tetraodon nigroviridis,
trois poissons dont le génome (presque) entièrement séquencé ne
contient pas de chromosomes sexuels reconnaissables. Dmrt1bY, le gène
maître de déterminisme du sexe chez le médaka Oryzias
latipes, n'est présent que chez quelques espèces du genre
Oryzias, et ne correspond donc pas au gène de déterminisme du
sexe universel des poissons (Matsuda et al. 2002, Nature 417:559;
Nanda et al. 2002, Proc Natl Acad Sci USA 2002, 99:11778). Ainsi, des
modèles alternatifs sont nécessaires pour l'identification du ou des
gènes déterminant le sexe chez plus de 23.000 espèces de poissons.
Le platy Xiphophorus maculatus est un excellent modèle pour
le clonage positionnel d'un gène maître de déterminisme du sexe (SD,
pour "sex determining"). Chez ce poisson, SD est localisé entre deux
gènes bien caractérisés au niveau moléculaire: l'oncogène Xmrk,
induisant la formation de mélanomes, et sa version proto-oncogénique
egfrb. Cette situation est favorable à l'identification de SD par
clonage de position. SD est lié à d'autres loci impliqués dans la
pigmentation et/ou le phénotype des mélanomes (loci Mdl et RY, pour
"red-yellow") et dans le déclenchement de la maturité sexuelle (locus
P, pour "puberté") (Fig. 3). L'identification moléculaire de ces loci
a des applications évidentes pour la recherche contre le cancer et
l'aquaculture.
Définition du Xiphophore selon Pierre Desproges
Xiphophore (n.m.): Le xiphophore est un petit poisson de coloration
variée, de six à dix centimètres de long et originaire du Mexique. Au
moment de se reproduire, le xiphophore émet un cri strident:
Christiane! pour appeler la xiphophorette qui accourt bientôt ventre à
flotte, la caudale en feu. S'ensuit alors une danse d'amour effrénée
dont le tendre spectacle ne peut que toucher le coeur de tout homme
capable de supporter un documentaire écologique marin sans balancer
ensuite une grenade offensive dans le lac d'Enghien (Dictionnaire
superflu à l'usage de l'élite et des bien nantis, 1985).
Références :
- Froschauer A, Korting C, Bernhardt W, Nanda I, Schmid M,
Schartl M, Volff JN (2001) Genomic plasticity and melanoma
formation in the fish Xiphophorus. Mar Biotechnol (NY) 3
(Supplement 1): S72-S80.
- Meierjohann S, Schartl M, Volff JN (2004) Genetic, biochemical
and evolutionary facets of Xmrk-induced melanoma formation in the
fish Xiphophorus. Comp Biochem Physiol C Toxicol
Pharmacol 138: 281-289.
- Schultheis C, Zhou Q, Froschauer A, Nanda I, Schmidt C, Naciri
M, Selz Y, Matschl S, Wenning M, Veith AM, Braasch I, Böhne A,
Dettai A, Ozouf-Costaz C, Segurens B, Couloux A, Bernard-Samain S,
Schmid M, Schartl M, Volff JN (2006) Molecular analysis of the
sex-determining region of the platyfish Xiphophorus
maculatus. Zebrafish (sous presse).
- Volff JN (2005) Genome evolution and biodiversity in teleost
fish. Heredity 94: 280-294.
- Volff JN, Schartl M (2001) Variability of genetic sex
determination in poeciliid fishes. Genetica 111: 101-110.
- Volff JN, Schartl M (2002) Sex determination and sex
chromosome evolution in the medaka, Oryzias latipes, and the
platyfish, Xiphophorus maculatus. Cytogenet Genome Res
99: 170-177.
|



 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

