Les chaetognathes
sont de petits invertébrés marins (longueur de 2 à 120 millimètres),
pour la plupart planctoniques. Leur corps transparent, longiligne et
fuselé, doté d'ailerons latéraux et caudal, leur a valu le nom
d'"arrow worms" (vers flèches). Ces animaux nageurs sont des
prédateurs : ils possèdent autour de la bouche des crochets chitineux,
rétractables au sein d'un capuchon, d'où leur nom grec (chaetognathe,
poil-mâchoire). Ils se nourrissent de petits invertébrés tels que les
copépodes, voire d'alevins. Le plan d'organisation des chaetognathes
est très simple : deux septa transverses cloisonnent la cavité
générale et délimitent une tête, un tronc (avec le coelome génital
femelle) et une queue (avec le coelome génital mâle). Les individus
sont hermaphrodites et la fécondation est interne. Le développement
est direct. On rencontre des chaetognathes dans les eaux côtières
aussi bien en Méditerranée qu'en Atlantique et en Manche.
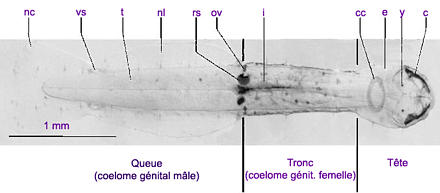
Spadella cephaloptera : c, crochet ; cc, couronne ciliaire ; e,
épiderme ; i, intestin ; nc, nageoire caudale ; nl, nageoire latérale ;
ov, oviducte ; rs, réceptacle séminal ; t, testicule ; vs, vésicule
séminale ; y, yeux. (crédit X. Caubit) |
Les chaetognathes constituent un petit phylum d'une
centaine d'espèces. Malgré sa modestie, ce groupe suscite la curiosité
des chercheurs depuis plus d'un siècle, car il ne trouve pas
facilement sa place au sein de l'arbre des animaux bilatériens (les
animaux dotés d'une symétrie bilatérale, à la différence des éponges
et des méduses, par exemple). En 1844, Darwin mentionnait ainsi ces
animaux "remarquables par l'obscurité de leurs affinités". Par la
suite, ils ont été classés dans un grand nombre de positions
différentes. Avant l'avènement des phylogénies moléculaires, les
zoologistes tendaient plutôt à les placer avec les Echinodermes
(étoiles de mer), les Hémicordés et les Cordés (ascidies, Vertébrés)
au sein du groupe des Deutérostomiens, c'est-à-dire les animaux dont
la bouche se forme secondairement, et ne dérive jamais du premier
orifice de l'embryon. Les chaetognathes présentent en effet ce
caractère, ainsi qu'un autre caractère partagé par les Deutérostomiens
: la formation du coelome par entérocoelie. Leurs cellules
photoréceptrices les rapprochent également des Cordés. Toutefois,
d'autres caractères les rapprochent des Protostomiens, l'autre grand
groupe d'animaux bilatériens (Mollusques, Annélides, Arthropodes,
Nématodes, etc.). C'est le cas de la position ventrale de la chaîne
nerveuse et de la présence de chitine. Enfin, les études de phylogénie
moléculaire, qui divergent parfois, s'accordent au moins sur un point
: elles excluent l'appartenance des chaetognathes aux deutérostomiens
sensu stricto. Toutefois, la fiabilité de ces travaux de ces
travaux est limitée par l'artéfact de l'attraction des longues
branches : l'évolution rapide des séquences des gènes étudiés
jusqu'ici chez les chaetognathes conduirait à déporter cette lignée
vers une position basale dans l'arbre.
Quoi qu'il en soit, les résultats préliminaires de
l'analyse moléculaire s'accordent avec ceux de l'analyse morphologique
: la mosaïque de caractères que présentent les chaetognathes est
l'indice du caractère ancestral de cette lignée. La paléontologie
témoigne également en ce sens, puisqu'on attribue à ce groupe des
fossiles vieux de plus de 500 millions d'années (Chen & Huang). L'inclusion dans les Deutérostomiens
étant exclue, plusieurs hypothèses demeurent possibles, parmi
lesquelles :
- La lignée des chaetognathes pourrait s'être individualisée
très tôt, avant la divergence Protostomiens-Deutérostomiens. Ces
animaux constitueraient alors un groupe de choix pour la
reconstitution de l'ancêtre commun de tous les bilatériens (cela
n'implique bien sûr pas que les chaetognathes ressemblent
particulièrement à cet ancêtre).
- La lignée des chaetognathes pourrait s'être individualisée
après la divergence de la branche des Protostomiens. Ils
s'enracineraient donc en position basale dans l'arbre des
Protostomiens, en dehors des deux grands groupes que sont les
Lophotrochozoaires (Mollusques, Annélides, Brachiopodes, etc.) et
les Ecdysozoaires (Arthropodes, Nématodes, etc.) ;
alternativement, ils pourraient trouver leur place au sein de l'un
de ces groupes.
La détermination de la position phylogénétique des
chaetognathes est d'une grande importance, car elle permet de
polariser les caractères majeurs utilisés pour définir les
Deutérostomiens. Dans les deux scénarios évoqués plus haut, la
deutérostomie et l'entérocoelie seraient ainsi des caractères
ancestraux (plésiomorphes) des bilatériens, hérités en commun par les
chaetognathes et les Deutérostomiens, et perdus de façon plus tardive
dans la branche des Protostomiens. On ne peut bien sur exclure
l'hypothèse moins probable d'une acquisition convergente de la
deutérostomie chez les chaetognathes et les Deutérostomiens.
La position phylogénétique des chaetognathes doit
toutefois être précisée par l'étude de nouvelles séquences. Le projet
de séquençage mis en oeuvre au Genoscope à l'initiative d'un consortium de trois laboratoires porte sur une
collection d'étiquettes de séquences exprimées (EST). Il sera ainsi
obtenu un nombre élevé de marqueurs moléculaires porteurs d'une
information phylogénétique. La congruence des arbres obtenus avec ces
différents marqueurs sera vérifiée. Cette utilisation des EST n'est
pas la seule : les ADNc ont été préparés à partir de différents stades
embryonnaires de Spadella cephaloptera, de sorte que le
séquençage livrera sans doute de nouveaux gènes du développement (un
gène Hox à la structure particulière a déjà été étudié (Papillon et al., 2003)). Ce chaetognathe se prête
bien aux méthodes d'analyse d'expression des gènes in situ, car
les oufs et les embryons sont totalement transparents. Spadella
cephaloptera vit dans les herbiers à posidonies, à faible
profondeur et près du rivage ; les individus sont donc facilement
accessibles. En outre, le cycle de reproduction de Spadella
cephaloptera est entièrement maîtrisé par l'une des trois équipes
et les différents stades du développement pré- et post-éclosion de cet
animal sont bien caractérisés. L'analyse de l'expression de gènes
d'intérêt à ces différents stades éclairera l'origine des mécanismes
moléculaires qui contrôlent le développement des métazoaires et leur
évolution, en rapport avec la mise en place des différents plans
d'organisation chez les bilatériens (paradigme " évo-dévo ").
Au niveau national, les équipes porteuses du projet
ont réalisé une banque de clones BAC dans le cadre du groupement
d'intérêt scientifique (GIS) " Génomique marine ". Cette banque
permettra peut-être d'isoler le cluster de gènes Hox de Spadella
cephaloptera et d'en tirer de nouvelles informations sur la mise
en place des plans d'organisation. Les trois équipes sont également
engagées, dans le cadre du sixième PCRD, dans un réseau de génomique
marine où elles sont porteuses du modèle chaetognathe.
- J.Y. Chen & D.Y. Huang, Science (2002) 298, 187
- D. Papillon et al., Dev. Genes Evol. (2003) 213, 142-148
- D. Papillon et al., Mol. Biol. Evol. (2004) 21, 1-8
- K.G. Helfenbein et al., Proc. Natl. Acad. Sci. USA (2004) 101, 10639-10643
|



 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

