Les cyanobactéries marines du genre Prochlorococcus sont les
plus petits organismes photosynthétiques connus; ce sont
aussi les plus abondants dans les océans et, par
conséquent, sur la planète. Avec leur taille inférieure
au micron (diamètre compris entre 0,5 et 0,7 micron), ces
cellules procaryotes sont restées inaperçues jusqu'à la
fin des années 1980, alors que l'existence d'organismes
photosynthétiques de l'ordre du micron
(picophytoplancton) était connue depuis 1979. Les
cellules de Prochlorococcus étaient en effet
impossibles à distinguer des bactéries hétérotrophes avec
les techniques microscopiques traditionnelles, et seule
la cytométrie de flux a permis de les révéler : en 1988,
l'équipe de S.W. Chisholm, de l'institut de technologie
du Massachusetts (MIT), annonça qu'elle avait découvert,
au moyen d'un cytomètre de flux embarqué, une nouvelle
classe d'organismes picoplanctoniques procaryotes. Ces
cellules se distinguaient des cyanobactéries typiques du
genre Synechococcus par leur faible signal de
fluorescence rouge et leur quasi-absence de fluorescence
orange, témoin d'une composition en pigments
photosynthétiques très inhabituelle pour une
cyanobactérie. Par ailleurs, elles semblaient très
abondantes: plus de 100 000 cellules par millilitre dans
les eaux hauturières, pourtant très pauvres en éléments
minéraux (oligotrophie). On sait aujourd'hui que les
cyanobactéries du genre Prochlorococcus dominent
numériquement dans les zones centrales de tous les océans
entre 40 degrés de latitude Nord et 40 degrés de latitude
Sud. Dans ces eaux oligotrophes, elles représentent 40 à
50% de la biomasse du phytoplancton. Elles sont en outre
présentes jusqu'à 200 mètres sous la surface, profondeur
où l'énergie lumineuse est mille fois plus faible que
celle reçue en surface.
Les raisons d'étudier les bactéries du genre Prochlorococcus
sont nombreuses. Tout d'abord, il s'agit d'organismes
d'une importance écologique capitale: avec les autres
cyanobactéries marines du genre Synechococcus,
ces cellules sont parmi les principaux producteurs
primaires du phytoplancton, qui est lui-même responsable
de la moitié de la photosynthèse à l'échelle du globe. Ce
sont donc des acteurs de premier plan dans le
fonctionnement océanique global, dans le cycle du
carbone, et par conséquent dans l'évolution du
climat.
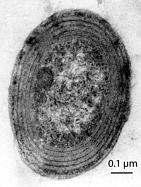
Les bactéries du genre Prochlorococcus sont aussi remarquables par leurs adaptations :
- une taille minuscule, qui facilite l'acquisition des sels
minéraux - présents en concentrations très faibles - grâce à
l'augmentation du rapport surface/volume ; en outre, la réduction
du diamètre cellulaire augmente le coefficient d'absorption des
pigments photosynthétiques en réduisant l'auto-ombrage : la
présence de plusieurs couches de membranes photosynthétiques (ou
thylacoïdes) se traduit par une contribution moindre des pigments
situés vers l'intérieur de la cellule par rapport aux pigments
plus périphériques, et cet effet qui diminue avec la taille de la
cellule.
- un génome de très petite taille chez certaines souches, une
caractéristique sans doute imposée par la petite taille des
cellules et la rareté de l'azote et du phosphore, qui rend les
nucléotides coûteux. La grande stabilité de l'environnement de ces
souches aurait rendu moins préjudiciable la diminution de
potentiel adaptatif consécutive à la perte de gènes. Avec une
taille d'environ 1,7 Mb, les génomes de ces souches sont les plus
petits connus parmi les cyanobactéries, et plus généralement parmi
les organismes oxyphototrophes. L'inventaire des gènes présents
dans de tels génomes "minimaux" présente un grand intérêt.
- une composition pigmentaire remarquable, avec la présence de
dérivés divinylés de la chlorophylle a et de la chlorophylle b,
uniques au genre Prochlorococcus. Ces pigments, associés à
des protéines dans la membrane des thylacoïdes, constituent
l'antenne photosynthétique majeure de Prochlorococcus. Chez
les cyanobactéries "typiques", au contraire, et notamment chez
Synechococcus, l'énergie solaire est principalement
collectée par des complexes nommés phycobilisomes, associant des
pigments vivement colorés, les phycobilines, à différentes
protéines; la chlorophylle a ne joue chez ces espèces qu'un rôle
secondaire. Or les phycobilisomes semblent absents chez
Prochlorococcus, ou seulement présents de façon vestigiale
chez certaines souches. Ce remplacement des phycobilisomes par une
antenne à chlorophylle a/b enchâssée dans la membrane des
thylacoïdes est retrouvé chez deux autres organismes,
Prochloron et Prochlorothrix, qui sont parfois
regroupés avec Prochlorococcus sous le nom de
"prochlorophytes". La nature de l'antenne des trois
prochlorophytes est similaire et son organisation dans les
thylacoïdes rappelle celle des algues vertes et des végétaux
supérieurs. On a cependant montré que les prochlorophytes
constituent trois lignées bien séparées au sein de la radiation
des cyanobactéries et qu'aucun de ces trois genres n'est sur la
lignée qui a conduit aux chloroplastes des cellules végétales. Il
s'agit donc d'une remarquable convergence
évolutive. Prochlorococcus se distingue d'ailleurs des
autres prochlorophytes, non seulement par la présence de dérivés
divinyl des chlorophylles, mais aussi par la présence
d'alpha-carotène à la place du bêta-carotène.
La compréhension du rôle des cyanobactéries du genre
Prochlorococcus dans l'écosystème océanique mondial passe par
l'étude détaillée de leurs caractéristiques physiologiques. Or
celles-ci apparaissent remarquablement diverses, avec la présence d'au
moins deux écotypes génétiquement et physiologiquement très
différents; entre ces écotypes, et même en leur sein, on constate une variation
importante au niveau de traits tels que les rapports pigmentaires,
l'intensité lumineuse optimale de croissance, l'efficacité
d'absorption de l'antenne, la capacité à utiliser l'azote, la
spécificité vis-à-vis des cyanophages (phages infectant les
cyanobactéries), etc.
Cette différenciation peut paraître à première vue surprenante pour un
organisme photoautotrophe, qui n'a besoin que de lumière, de dioxyde
de carbone et de sels minéraux pour croître et qui vit dans un milieu
uniformisé par l'agitation des eaux. La colonne d'eau, dans les zones
centrales de l'océan aux latitudes tropicales et sub-tropicales, est
en fait fortement stratifiée par la densité et offre différentes
niches écologiques: les eaux de surface reçoivent une énergie
lumineuse importante et la concentration en sels minéraux y est très
faible; au contraire, les eaux comprises entre 100 et 200 mètres de
profondeur reçoivent très peu de lumière, au spectre décalé vers le
bleu, mais sont plus riches en sels nutritifs. Les souches de
Prochlorococcus qui croissent dans les eaux de surface sont
rangées dans l'écotype de haute lumière, et leur antenne contient
principalement le dérivé divinylé de la chlorophylle a. Les souches
qui croissent préférentiellement entre 80 et 200 mètres de profondeur
constituent l'écotype de basse lumière et contiennent beaucoup de
divinyl- chlorophylle b, qui absorbe de façon optimale la lumière
bleue. Les génomes de ces souches possèdent plusieurs copies du gène
qui code pour la protéine de l'antenne; il s'agit sans doute d'une
adaptation à la faible luminosité.
Afin d'élucider de façon plus complète les bases génétiques de ces
adaptations, les chercheurs ont entrepris de séquencer les génomes de
souches de Prochlorococcus issues de niches écologiques
différentes. Le Joint Genome Institute (Walnut Creek, Californie) a
ainsi séquencé les génomes de deux souches représentatives des
écotypes de haute lumière (souche MED4) et de basse lumière (souche
MIT9313). Cependant, la diversité génétique des souches de basse
lumière est bien plus grande que celle des souches de haute lumière,
et la séquence génomique de MIT9313 ne pouvait suffire à illustrer les
tendances évolutives parmi ces souches "d'eau profonde". Le
séquençage d'une autre souche de basse lumière a donc été entrepris en
parallèle au Genoscope à l'initiative de l'équipe
"phytoplancton océanique" de la Station biologique de
Roscoff. Cette souche, nommée Prochlorococcus marinus SS120,
est la souche type du genre Prochlorococcus et la mieux
caractérisée d'un point de vue écophysiologique. D'un point de vue
phylogénétique, la souche SS120 apparaît assez éloignée de l'autre
souche de profondeur séquencée, MIT9313, qui s'enracine à la base de
la radiation des Prochlorococcus.
Les séquences génomiques de Prochlorococcus SS120, MED4 et
MIT9313 ont fait l'objet de publications en août
2003, en même temps que la séquence d'une souche de
Synechococcus, et leur comparaison a été très instructive. Le
premier enseignement de ces séquences est la confirmation de
l'hétérogénéité des souches de basse lumière: le génome de SS120, qui
mesure 1,75 Mb et contient 1884 gènes, est presque aussi petit que
celui de la souche de haute lumière MED4 (1,66 Mb, 1716 gènes) et
apparaît comme un génome quasi minimal ; en revanche, le génome de la
seconde souche de profondeur, MIT9313, est nettement plus gros (2,4
Mb, 2275 gènes). L'annotation indique par ailleurs que cette dernière
souche est capable d'exploiter une gamme plus large de nutriments. Par
exemple, MIT9313 peut utiliser les ions ammonium, nitrite, nitrate,
cyanate, l'urée, les acides aminés et les peptides comme source
d'azote, tandis que SS120 ne peut utiliser que l'ammonium et les
acides aminés. SS120 serait en fait adapté à un environnement très
stable, à la limite de la zone de pénétration de la lumière, tandis
que MIT9313 serait adapté à des profondeurs plus faibles,
correspondant à une zone de transition où les ressources disponibles
sont plus diverses.
La comparaison de la séquence génomique de Prochlorococcus
marinus SS120 avec celles des trois cyanobactéries d'eau douce
déjà séquencées révèle la nature des gènes absents ou sous-représentés
dans le génome "minimal" de SS120 : certains gènes
photosynthétiques, des gènes impliqués dans la réparation de l'ADN,
l'importation des solutés, le métabolisme intermédiaire, et dans de
nombreuses autres fonctions. En particulier, les gènes impliqués dans
la transduction du signal et la réponse aux stress environnementaux
ont subi chez SS120 une réduction drastique, sans doute en raison de
la grande stabilité de l'environnement de cette souche. Autre facteur
de compacité: le génome de SS120 contient peu de gènes
paralogues. L'un des rares exemples d'amplification génique concerne
les 8 gènes pcb codant les protéines d'antenne (contre 2 chez
MIT9313).
L'ensemble de ces données génomiques permettra des études
écophysiologiques plus détaillées. L'enjeu est de mieux comprendre le
fonctionnement de l'écosystème picoplanctonique, en réponse aux
changements environnementaux tels que l'augmentation du dioxyde de
carbone dans l'atmosphère. Plusieurs équipes impliquées dans
l'annotation de SS120, dont l'équipe de Roscoff, participent
actuellement au projet européen MARGENES,
qui consiste à identifier et caractériser par des approches
post-génomiques des gènes spécifiques de niches écologiques ou de
fonctions particulières (photoprotection, nutrition, perception des
signaux environnementaux, etc.) chez les cyanobactéries marines et les
diatomées.
Un autre sujet, étudié dans différents laboratoires européens et américains, est la dynamique des populations de Prochlorococcus et Synechococcus, qui subissent l'assaut de minuscules prédateurs eucaryotes de quelques microns, et sont infectées par les cyanophages, qui semblent par ailleurs à l'origine de transferts horizontaux. Là encore, l'enjeu est de caractériser les différents génotypes qui interviennent dans ces relations interspécifiques. Enfin, le Département de l'Energie américain (DOE), dans le cadre de son programme Genome to Life (GTL), soutient une étude de modélisation du métabolisme global de Prochlorococcus MED4, à partir de la séquence génomique de cette souche de haute lumière. Totalement insoupçonné il y a moins de 20 ans, Prochlorococcus fait aujourd'hui l'objet d'un nombre impressionnant d'études génomiques, post-génomiques, physiologiques et écologiques, à la hauteur de son importance dans le fonctionnement océanique global.
L'annotation de la séquence génomique de Prochlorococcus marinus SS120 a été réalisée par un consortium européen composé des laboratoires suivants:
Equipe "phytoplancton océanique" (F. Partensky et D. Vaulot) au centre d'études océanographiques et de biologie marine de Roscoff (UMR 7127 CNRS et Université Paris 6); Unité des cyanobactéries (N. Tandeau de Marsac) au département de microbiologie fondamentale et médicale de l'institut Pasteur (URA 2172 CNRS); Institüt für Biologie und Genetik (W. Hess, aujourd'hui à Ocean Genome Legacy), Humboldt Universität zu Berlin; Department of Biological Sciences (D. Scanlan), Warwick University, Coventry, Royaume-Uni.
A. Dufresne et al. (2003), Genome sequence of the cyanobacterium Prochlorococcus marinus SS120, a nearly minimal oxyphototrophic genome, Proc. Natl. Acad. Sci. USA 100, 10020-10025.
G. Rocap et al. (2003), Genome divergence in two Prochlorococcus ecotypes reflects oceanic niche differentiation, Nature 424, 1042-1047.
|



 L'annotation du génome de Prochlorococcus marinus SS120 a été réalisée par un
 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

