| -> Accès au projet de séquençage |
|
Collaboration
 FRE 2815 - Immunologie et embryologie
moléculaires
Institut de Transgénose
Orléans, France- Equipe ATIP Génome, Développement et
Evolution
Laboratoire Populations, Génétique et Evolution
(UPR9034), CNRS
Gif-sur-Yvette, France
- Développement et Evolution du cerveau
Institut Alfred Fessard (UPR2197), CNRS
Gif-sur-Yvette, France
|
|
1. Résumé du projet
Ce projet vise à
mettre en place des approches génomiques et post-génomiques de la
génétique du développement chez deux espèces qui occupent des
positions phylogénétiques-clefs chez les vertébrés, la lamproie
L. fluviatilis et la roussette S. canicula. Le but
général de ce travail est de préciser les mécanismes moléculaires qui
fondent l'unité de ce groupe ainsi que les variations qui rendent
compte de sa diversification. Nous chercherons plus
particulièrement :
- à résoudre les points qui restent indéterminés dans la
phylogénie des chordés,
- à préciser la chronologie exacte et les mécanismes des
duplications géniques qui sont intervenues chez les vertébrés
ainsi que le mode d'évolution des familles multigéniques
correspondantes et
- à comparer entre les grands groupes de vertébrés les réseaux
génétiques qui contrôlent plusieurs processus développementaux.
La réalisation de ces objectifs sera fondée sur des caractérisations
du transcriptome de la lamproie et de la roussette à plusieurs stades
embryonnaires, des études de profils d'expression embryonnaire à haut
débit et chez la roussette, la construction d'une banque de BACs. Ce
projet devrait fournir des ressources importantes au plan
international pour une meilleure compréhension des relations entre
évolution et développement chez les vertébrés.
haut de
page
2. Résultats des équipes impliquées
Au cours des dernières années, nos travaux ont permis d'évaluer la
possibilité d'utiliser la lamproie et la roussette pour des analyses
comparatives des mécanismes génétiques qui contrôlent le développement
embryonnaire et ont confirmé l'intérêt de ces espèces. Nos résultats
concernent deux aspects principaux, l'évolution des familles
multigéniques chez les vertébrés, analysée à travers l'étude de
systèmes modèles, et l'évolution de plusieurs processus
développementaux.
Dans le premier cas, des analyses comparatives
détaillées nous ont permis de préciser la composition et le mode
d'évolution de plusieurs familles multigéniques modèles codant pour
des facteurs de transcription à homéodomaine (Emx, Otx). Les résultats
obtenus montrent que dans ces deux cas, la fixation des classes
d'orthologie a précédé la radiation des gnathostomes. Les analyses
comparées des profils d'expression soulignent le rôle essentiel mais
non exclusif des signaux de régulation en -cis dans l'évolution
fonctionnelle de ces familles et la complexité des processus mis en
jeu, qui impliquent des réaffectations fonctionnelles (" function
shuffling "), comme des recrutements vers des nouveaux
territoires d'expression. L'étude d'une autre famille de gènes à
homéodomaine (Evx) est également engagée chez la roussette, avec
plusieurs séquences clonées chez cette espèce. Par ailleurs, nos
travaux ont permis de montrer que l'étude des profils d'expression
embryonnaire de gènes impliqués dans la régionalisation précoce du
cerveau antérieur (Otx, Emx, Pax6, Pax3, Lhx1/5, Lhx2/9) permet de
retrouver chez ces deux groupes la plupart des subdivisions
neuromériques caractérisées chez les ostéichtyens. Des différences
notables sont cependant également observées : ainsi, à la différence
des vertébrés à mâchoires, Nkx2.1 n'est pas exprimé dans le
télencéphale chez la lamproie. Nous avons également caractérisé chez
la roussette les profils d'expression embryonnaire de plusieurs gènes
qui jouent des rôles essentiels en cours de gastrulation chez les
ostéichtyens (Fox-a2, Lim1, Otx , Brachyury) et ainsi fourni la
première caractérisation moléculaire de la gastrulation chez un
chondrichtyen. Ces premières analyses fournissent le fondement
d'études beaucoup plus détaillées, actuellement en cours à l'aide de
nouveaux marqueurs récemment amplifiés dans nos laboratoires.
haut de
page
3. Projet de recherches
L'émergence des vertébrés a été marquée par l'apparition de très
nombreuses innovations morphologiques et physiologiques (présence d'un
crâne, d'un coeur cloisonné et des reins, apparition d'un cerveau
élaboré présentant à l'état embryonnaire cinq subdivisions bien
caractérisées et d'organes sensoriels pairs, individualisation au
cours du développement de populations cellulaires qui présentent des
propriétés de migration ou de différenciation complexes, comme les
placodes ou les crêtes neurales). Ce groupe d'animaux est par ailleurs
caractérisé par une très grande diversité morphologique, associée à
des adaptations à des milieux et modes de vie très variés (apparition
des mâchoires chez les gnathostomes, évolution de la structure de
l'oreille interne des tétrapodes lors du passage à la vie terrestre,
adaptations variées du membre chiridien). Les bases moléculaires de
ces changements, à la transition entre prochordés et crâniates puis
chez les vertébrés, restent cependant très mal comprises. Plusieurs
auteurs ont avancé l'hypothèse d'un lien entre la complexification
morphologique des vertébrés et l'expansion de leur génome par
duplications géniques. Il est en effet aujourd'hui acquis que
l'émergence des vertébrés est corrélée à l'expansion d'un très grand
nombre de familles de gènes, présents à une copie unique chez les
prochordés. Selon les scénarios classiques d'évolution de familles
multigéniques (néo-fonctionnalisation), une duplication génique a pour
effet le relâchement des contraintes de sélection s'exerçant sur l'une
des copies, qui peut donc évoluer vers de nouvelles fonctions,
correspondant par exemple à des innovations évolutives, l'autre
conservant les fonctions ancestrales. Aucun exemple clair de ce mode
d'évolution n'a cependant été décrit dans le contexte particulier de
l'origine des vertébrés. En revanche, d'autres modèles, aux
conséquences fonctionnelles très différentes, ont été proposés. Ainsi,
comme le suggère l'étude de duplications géniques intervenues
récemment chez les actinoptérygiens, le premier effet de ce type
d'événement génétique pourrait être une répartition des fonctions
ancestrales entre paralogues, ce qui n'implique aucune innovation
fonctionnelle. Par ailleurs, de nombreux mécanismes moléculaires
autres que les duplications géniques, tels que les modifications de
territoires d'expression, l'acquisition de nouveaux domaines
structuraux par des facteurs de transcription ou l'épissage alternatif
des transcrits, peuvent conduire à des innovations morphologiques,
comme l'ont démontré les études de plusieurs systèmes génétiques chez
des modèles protostomiens.
|
L'étude des mécanismes génétiques du développement embryonnaire
fournit actuellement une approche renouvelée de l'évolution des
morphologies chez les métazoaires. Si les approches expérimentales
directes qui peuvent être mises en oeuvre pour étudier des processus
de micro-évolution sont inapplicables au problème de l'émergence et de
la diversification des vertébrés, des analyses comparatives entre les
grands groupes de ce phylum et les prochordés peuvent permettre de
préciser les changements intervenus à des périodes charnières de leur
évolution. Au cours des vingt dernières années, les analyses
fonctionnelles du développement embryonnaire chez les organismes
modèles vertébrés ont conduit à des progrès considérables dans la
compréhension des mécanismes génétiques du développement chez les
ostéichtyens. Ces données constituent une référence indispensable mais
elles sont très insuffisantes dans une perspective comparative
puisqu'elles excluent les deux autres grands autres groupes de
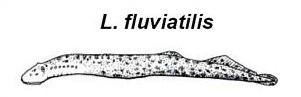
vertébrés, les cyclostomes et les chondrichtyens. Notre projet vise à
mettre en place les outils nécessaires à des caractérisations
moléculaires du développement embryonnaire chez un cyclostome, la
lamproie Lampetra fluviatilis, et un chondrichtyen, la roussette
Scyliorhinus canicula, par des analyses du transcriptome chez ces deux
espèces et la construction d'une banque de BACs chez la
roussette. Cette stratégie devrait nous permettre d'atteindre trois
objectifs principaux :
- résoudre de façon définitive les problèmes qui subsistent
dans la phylogénie des chordés,
- caractériser les modes d'évolution des familles multigéniques
fréquemment rencontrées dans les génomes des vertébrés à travers
l'étude de systèmes modèles,
- préciser les réseaux génétiques qui contrôlent les processus
développementaux étudiés par les équipes associées afin d'évaluer
leur conservation et de mettre en évidence d'éventuelles variations,
notamment celles qui peuvent être liées à des innovations
morphologiques.
Elle devrait de plus fournir à la communauté internationale des
données génétiques chez deux espèces qui occupent des positions
phylogénétiques clefs chez les vertébrés.
haut de
page
4. Objectifs du projet
Phylogénie des chordés
Comprendre l'origine et la diversification des métazoaires implique
d'établir de façon fiable les relations de parenté entre les
différents phylums animaux. Dans le taxon des deutérostomiens,
plusieurs noeuds très importants restent mal résolus, comme la
monophylie des cyclostomes et les relations de parenté entre les
chordés, céphalochordés et urochordés. Nous développons depuis
plusieurs années une approche phylogénomique afin d'améliorer les
inférences phylogénétiques. Les outils informatiques nécessaires ont
été élaborés et validés au cours d'études précédentes de la position
phylogénétique d'organismes tels qu'un choanoflagellé (Monosiga
ovata) et une amibe (Mastigamoeba balamuth) en utilisant
les séquences d'EST de ces organismes (Bapteste et al. 2002. Proc Natl
Acad Sci U S A. 99:1414-1419; Philippe et al., 2004. Mol Biol
Evol. 21:1740-1752). Le séquençage d'ESTs de la lamproie (Lampetra
fluviatilis) et du requin (Scyliorhinus canicula)
permettra d'enrichir notre échantillonnage taxonomique de deux
organismes clés pour lesquels peu de données sont actuellement
disponibles (projet développé par D. Casane, en collaboration avec
H. Philippe).
haut de
page
Evolution des familles multigéniques chez les vertébrés
Chronologie et mécanisme des duplications géniques chez les
vertébrés. L'hypothèse du rôle de duplications géniques dans
l'émergence des vertébrés est très largement fondée sur des
comparaisons entre ostéichtyens et céphalochordés et peu d'études sont
disponibles chez les chondrichtyens et les cyclostomes. Quelques
travaux indiquent cependant une bonne correspondance entre les classes
de gènes orthologues identifiées chez les ostéichtyens et les
chondrichtyens. En revanche, pour la plupart des systèmes génétiques
étudiés, aucune relation claire ne se dégage entre les classes de
gènes identifiées chez les gnathostomes et les gènes caractérisés chez
les cyclostomes, généralement très divergents. S'il est clair que les
duplications géniques observées chez les ostéichtyens ont eu lieu
avant la radiation des gnathostomes et après la séparation entre
céphalochordés et crâniates, la chronologie précise de ces événements
est mal connue. Cette incertitude est principalement due au manque de
données de séquences chez les cyclostomes et les chondrichtyens. Le
mécanisme des duplications est aussi sujet à controverse, l'hypothèse
couramment avancée de deux phases successives de polyploïdisation
n'ayant pas encore été clairement démontrée. Une première partie du
projet visera donc à préciser les relations phylogénétiques de
nombreuses familles multigéniques des cyclostomes et des gnathostomes,
en déterminant et en analysant des jeux de séquences beaucoup plus
étendus que ceux qui sont actuellement disponibles (projet développé
par D. Casane en collaboration avec H. Philippe).
Mode d'évolution de familles multigéniques modèles. Un deuxième
aspect de cette étude visera à étudier le mode d'évolution de trois
familles multigéniques modèles, les gènes Hox, Dlx et Evx, par une
analyse comparative systématique des structures et profils
d'expression embryonnaire chez un large spectre de vertébrés. Ces
gènes ont été choisis pour trois raisons principales. Tout d'abord,
les familles correspondantes, dont la composition est bien
caractérisée chez les ostéichtyens (mammifères et poisson-zèbre) et
les céphalochordés fournissent des exemples clairs de duplications
chez les vertébrés. Les données sont cependant actuellement très
incomplètes pour les cyclostomes et les chondrichtyens. Les séquences
disponibles indiquent par ailleurs des variations importantes de
vitesse d'évolution entre les différentes classes, dont la
signification biologique est inconnue. Enfin, les comparaisons de
profils d'expression embryonnaire entre cépholochordés et
ostéichtyens suggèrent une complexification considérable des
fonctions de ces gènes chez les vertébrés. Un grand nombre de ces
fonctions concernent des processus morphogénétiques correspondant à
des innovations intervenues chez certains groupes de vertébrés (parmi
beaucoup d'autres, on peut citer le rôle des gènes Hox dans le
développement des membres pairs, le rôle des gènes Evx dans la
formation des dents pharyngiennes et des nageoires rayonnées, le rôle
des gènes Dlx dans la formation de dérivés des placodes et des crêtes
neurales). L'enjeu est donc ici de corréler de façon précise les
duplications des gènes, les modifications de leurs territoires
d'expression embryonnaire et les évènements morphogénétiques qui en
dépendent (projet développé par D. Casane).
haut de page
Evolution de processus développementaux chez les vertébrés
Gastrulation. S'il est actuellement clair que le contrôle génétique de
la gastrulation fait intervenir des réseaux conservés à très grande
échelle évolutive, l'étendue précise des conservations dans les
interactions génétiques et cellulaires est loin d'être établie même
chez un groupe d'espèces relativement proches comme les
vertébrés. Cette situation est liée à la divergence extensive des
morphologies, les difficultés à comparer des approches fonctionnelles
différentes mais également la complexité de l'évolution de certains
systèmes génétiques, marquée par des duplications ou pertes de gènes,
des accélérations de taux d'évolution dans certains taxons. Au cours
de nos analyses précédentes, la petite roussette S. canicula
s'est révélée un modèle de choix pour l'étude de l'évolution des
mécanismes de gastrulation chez les vertébrés non seulement de par sa
position phylogénétique charnière chez les gnathostomes mais également
du fait d'une morphologie d'interprétation particulièrement simple et
d'une ressemblance totalement inattendue avec les embryons de certains
amniotes (reptiles, poulet). L'étude de cette espèce pourrait donc
permettre de mieux comprendre la relation et les mécanismes de
transition entre les modes de gastrulation mis en oeuvre chez les
principales espèces modèles étudiées (Sauka-Spengler et al,
2003. Dev. Biol. 263, 296-307). Nous chercherons à étendre la
caractérisation moléculaire de la gastrula chez la roussette afin de
préciser d'éventuelles homologies de territoires en centrant l'étude
sur les régions organisatrices mais également les tissus
extraembryonnaires, qui chez les amniotes sont des sources de signaux
sécrétés essentiels pour le développement de l'embryon. Nous
utiliserons pour cela une approche de type transcriptome,
éventuellement complétée par la technique de PCR dégénérée. Nous
compléterons ces descriptions moléculaires par la mise en oeuvre
d'approches fondées sur la transgenèse hétérologue. Il s'agira dans ce
cas d'intégrer dans le génome murin des BACs de roussette, portant
des gènes marqueurs de territoires bien définis chez cette espèce, et
de tester leur profil d'expression dans le contexte murin. Le gène
Otx5 de roussette fournit un système particulièrement intéressant pour
cette approche. Il est en effet exprimé à des stades très précoces de
la gastrulation au niveau de la marge postérieure du blastoderme, qui
pourrait être homologue au croissant de Koller ou à la zone marginale
postérieure du poulet (projet développé par S. Mazan et
D. Casane).
Evolution du cerveau antérieur chez les vertébrés. Nous chercherons à
mettre en oeuvre une approche descriptive, visant à comparer de façon
systématique les mécanismes génétiques impliqués dans la spécification
précoce et la régionalisation du cerveau antérieur chez les
cyclostomes et les chondrichtyens. Les études moléculaires suggèrent
que certaines grandes subdivisions du système nerveux central,
notamment le long de l'axe antéro-postérieur, sont vraisemblablement
conservées chez l'ensemble des chordés. Toutefois, le cerveau, et en
particulier le cerveau antérieur, présente une complexification et une
diversification considérable, à la fois morphologique et
fonctionnelle, chez les vertébrés. Les résultats obtenus jusqu'ici,
essentiellement chez les ostéichtyens, suggèrent une bonne
conservation de la spécification régionale précoce. Elle s'accompagne
pourtant de changements subtils dans les profils d'expression de gènes
impliqués dans des processus de différenciation cellulaire. Le projet
proposé visera à préciser le réseau génétique, conservé chez
l'ensemble des vertébrés, qui détermine l'unité du prosencéphale dans
ce groupe, mais également les variations qui provoquent les
différences morphologiques manifestes entre les groupes de
vertébrés. Cette analyse sera effectuée par l'étude systématique chez
la roussette et la lamproie des profils d'expression de gènes codant
pour des facteurs de transcription bien caractérisés chez les
ostéichtyens, et impliqués dans la spécification précoce du
neuroectoderme antérieur (gènes Hex, Hesx-1, Fox-a2, goosecoid), dans
la régionalisation du tube neural (gènes Pax, Dlx, Emx, Nkx, Tb, Gsh,
Lef, Ngn, TBr), dans les voies de signalisation qui jouent un rôle
important dans cette régionalisation (Bmp, Fgf, Wnt, Shh), et dans
des processus de différenciation neuronale (LIM-hd). Cette approche,
par le choix des modèles roussette et lamproie, devrait permettre
d'évaluer la conservation des profils d'expression embryonnaire des
gènes étudiés, d'identifier des centres organisateurs potentiels du
prosencéphale, et de comprendre comment se sont produites des
innovations majeures à la base des vertébrés. Pour citer un exemple,
la lamproie n'a pas de pallidum, composante majeure du sous-pallium
des tétrapodes, impliquée dans la programmation du mouvement
volontaire. L'analyse à travers nos familles de gènes de la
spécification régionale et cellulaire dans le sous-pallium de la
lamproie et la roussette permettra de proposer un scénario de
l'émergence d'une structure cérébrale, et de la fonction qui lui est
associée. Finalement, l'apport des banques génomiques sera un
complément pour l'étude des séquences régulatrices et de leur
évolution, permettant d'affiner avec l'apport de la transgenèse et des
études de promoteurs les scénario évolutifs proposés (projet développé
par S. Rétaux et S. Mazan, en collaboration avec I. Rodriguez-Moldes
, M. C. Di Rodicio et M. Pombal).
Formation des structures nerveuses corticales chez les
chondrichtyens. Les structures du cerveau des vertébrés sont
organisées spatialement selon deux grands modes : nucléaire (les corps
cellulaires sont disposés en amas) et cortical (disposition en
couches). Les principales structures corticales sont essentiellement
dorsales, à l'exception notable du bulbe olfactif : cervelet et toit
du mésencéphale (toit optique/colliculus supérieur et torus
semicirculaire/colliculus inférieur) chez tous les gnathostomes, et
chez les mammifères seulement, pallium (télencéphale dorsal, qui donne
le cortex cérébral dans ce groupe). En ce qui concerne le toit optique
au moins, cette structure est anatomiquement (disposition en couches)
et physiologiquement (fonctionnement en colonnes radiales) semblable
chez les actinoptérygiens et les sarcoptérygiens ; en revanche les
mécanismes de formation sont très différents dans les deux groupes
(actinoptérygiens : zone mitotique marginale à croissance continue
-Nguyen et al., 1999. J. Comp. Neurol. 413, 385-404- versus
sarcoptérygiens : neuroépithélium ventriculaire sous-jacent à la
structure, et à fonctionnement limité dans le temps). Rien n'est connu
de la morphogenèse tectale chez les chondrichtyens. Nous avons isolé
au cours d'un crible systématique par hybridation in situ (Nguyen et
al., 2001. Mech. Dev. 107, 55-67) un grand nombre de gènes impliqués
dans la morphogenèse tectale chez le médaka (poisson
téléostéen). L'analyse de l'expression de certains de leurs
orthologues chez la roussette serait d'un intérêt tout particulier :
la compréhension des mécanismes de morphogenèse de structures
corticales (toit optique donc, et éventuellement cervelet) chez ce
chondrichtyen serait susceptible d'éclairer l'origine évolutive des
mécanismes de corticalisation chez les vertébrés (projet développé par
F. Bourrat, en collaboration avec S. Rétaux et I. Rodriguez-Moldes).
Organogenèse: origine et évolution des mécanismes moléculaires de
l'organogenèse du squelette interne et des structures dentaires chez
les vertébrés. Squelette interne et dents sont des caractères
hautement informatifs pour qui veut étudier l'histoire évolutive des
vertébrés. En effet, ces tissus durs sont des innovations évolutives
exclusivement présentes dans ce taxon qui, de plus, montrent une
extraordinaire diversité morphologique et constituent l'essentiel des
données paléontologiques. La position phylogénétique de la roussette
et son anatomie en font un sujet d'étude clé pour répondre à quelques
questions qui sont depuis très longtemps et très régulièrement l'objet
de controverses. Par exemple, l'hypothèse classique veut que les dents
orales soient issues du recrutement, dans la mâchoire, des cascades
génétiques à l'origine des denticules dermiques (présents à la surface
de la peau de chondrichtyens actuels). Cependant, une hypothèse
nouvellement proposée tend à préférer une " origine
pharyngienne " des mécanismes moléculaires responsables des
structures dentaires (Smith et al., 2003. Evol Dev. 5:394-413). La
comparaison de la régulation de la mise en place des dents orales de
la souris (très bien décrite), avec celle des dents pharyngiennes du
poisson zèbre (très mal connue et sur laquelle nous travaillons avec
d'autres équipes) et des denticules dermiques (aucune donnée
actuellement) devrait apporter un nouvel éclairage très intéressant
sur cette problématique. L'organisation ancestrale des nageoires, leur
évolution (en particulier en membre chiridien chez les tétrapodes) et
les problèmes d'homologie de structures associées sont aussi des
questions très anciennes qui pourront énormément progresser grâce aux
connaissances des mécanismes moléculaires impliqués dans la formation
des nageoires d'un chondrichtyen. La caractérisation du transcriptome
à un moment pendant lequel se développe le squelette interne et les
structures dentaires de la roussettes nous permettra d'identifier et
d'étudier les patrons d'expression de gènes candidats pour un rôle
dans leur mise en place (projet développé par D. Casane en
collaboration avec M. Smith).
haut de
page
|



 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

