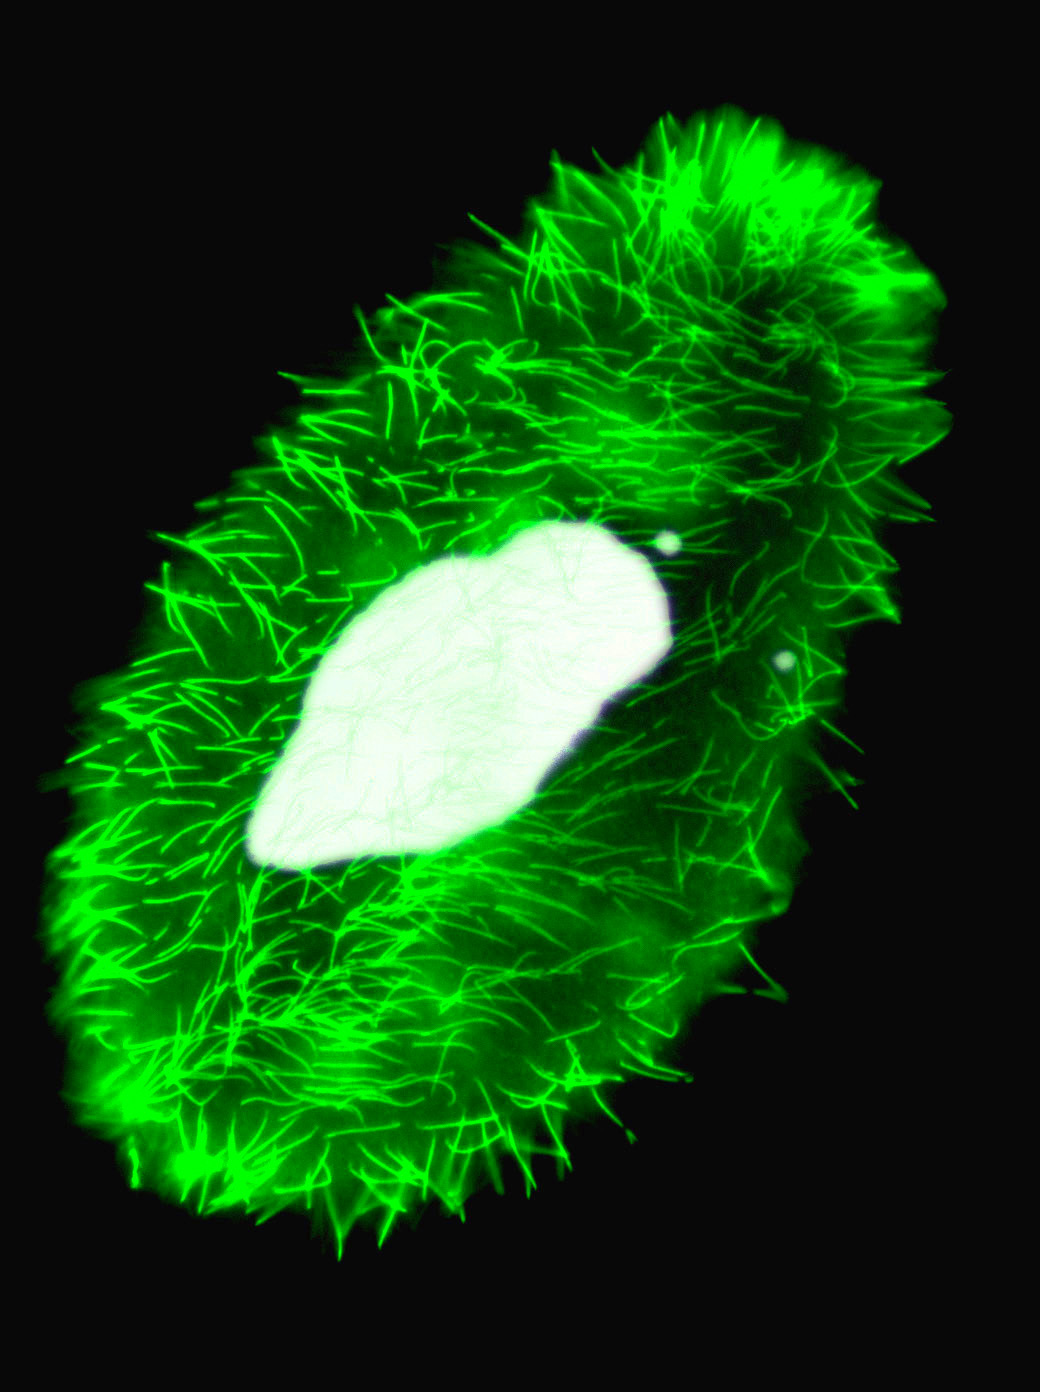
Cliquer pour agrandir
Les cils de la
paramécie, ici marqués en vert, recouvrent toute la cellule et
permettent à l'organisme de nager à la recherche des bactéries dont il
se nourrit. A droite de l'énorme masse du macronoyau, marqué en bleu
clair, on distingue les micronoyaux sous la forme de deux petits
points. (Photo J. Beisson) |
Bien connue
des collégiens comme modèle d'organisme unicellulaire, la paramécie
(Paramecium tetraurelia) est une cellule eucaryote de grande
taille (120 micromètres), recouverte de cils vibratiles, qui
appartient au phylum des ciliés (Ciliophora). Les ciliés sont
apparentés, au sein du clade des alvéolés, avec le groupe des
apicomplexa, unicellulaires parasites parmi lesquels on trouve
Plasmodium falciparum, principal agent du paludisme. La
paramécie est un organisme à la fois unicellulaire et complexe ; elle
constitue par conséquent un excellent modèle pour l'étude, par une
approche génétique, de nombreuses fonctions différenciées présentes
chez les organismes multicellulaires mais absentes chez des eucaryotes
unicellulaires plus simples comme la levure.
Les ciliés présentent la particularité fascinante de séparer les
lignées germinale et somatique à l'intérieur d'un cytoplasme
unique. Ces cellules possèdent en effet deux noyaux. Un noyau germinal
(le micronoyau) assure la transmission de l'information génétique à
travers les processus sexuels, tandis qu'un noyau somatique (le
macronoyau) assure l'expression de cette information. A chaque
génération sexuelle, un nouveau noyau somatique est produit par des
réarrangements programmés de tout le génome contenu dans le noyau
germinal.
Des processus fondamentaux sont étudiés chez la paramécie.
- Ces réarrangements programmés du génome, ainsi que
l'amplification massive d'ADN qui produit le noyau somatique,
impliquent des événements de fragmentation chromosomique, d'addition
de télomères et d'élimination précise de séquences internes. Ces
processus sont similaires aux réarrangements somatiques intervenant
dans la genèse de la diversité des immunoglobulines, et aux
remaniements chromosomiques associés à certains cancers chez les
vertébrés. Chez la paramécie, ces réarrangements chromosomiques
touchent l'ensemble du génome et peuvent être facilement
déclenchés.
- L'extinction génique dépendante de l'homologie de
séquence, mécanisme de défense des génomes contre des acides
nucléiques parasites, est présent chez la paramécie et a été conservé
au cours de l'évolution des eucaryotes. Ce mécanisme, appelé aussi
interférence ARN, peut être expérimentalement déclenché par
l'introduction d'un transgène ou d'ARN double brin dans la cellule. Il
agit au niveau post-transcriptionnel et conduit à la dégradation de
tous les ARN messagers homologues dans la cellule. L'interférence ARN
est aussi impliquée dans le développement du noyau somatique de la
paramécie, ce qui peut expliquer l'hérédité non mendélienne de
certains caractères chez ce cilié. La paramécie est un organisme
privilégié pour l'étude de ces phénomènes épigénétiques, car ils y
sont facilement accessibles à l'expérimentation. Leur rôle biologique,
par exemple dans le développement des eucaryotes supérieurs, reste à
analyser.
- La paramécie est également capable d'une exocytose
régulée de vésicules de sécrétion (trichocystes) en réponse à une
stimulation externe, comme cela se produit lors de la sécrétion
d'hormones ou de neuromédiateurs chez les animaux. Cette sécrétion
régulée implique une étape de fusion membranaire déclenchée par une
voie de signalisation trans-membranaire. Elle sert à la défense contre
les prédateurs chez la paramécie, mais n'est pas essentielle dans les
conditions de culture du laboratoire. En conséquence, la paramécie
fournit l'un des rares modèles où la sécrétion régulée, et en
particulier la dernière étape de fusion membranaire lors de
l'exocytose, peut-être disséquée par une approche génétique.
- La membrane de la paramécie est excitable. Comme dans les neurones
et les cellules musculaires, cette excitabilité membranaire
est gouvernée par l'activité de canaux ioniques et de récepteurs
membranaires. Chez la paramécie, leur fonctionnement contrôle la
vitesse et la direction de battement des cils de la
cellule. L'activité de ces canaux est donc facilement visualisée par
un comportement de nage. C'est chez la paramécie qu'ont été isolés les
premiers mutants de canaux ioniques à la fin des années 1960, ainsi
que les premiers mutants de calmoduline (protéine ubiquitaire réglant
de nombreux processus cellulaires en réponse à des changements de
concentration en calcium).
- La paramécie possède des corps basaux, organites homologues des
centrioles présents dans les cellules des organismes
multicellulaires. Ces édifices protéiques complexes ont la remarquable
propriété de se dupliquer à chaque division par un mécanisme non
encore élucidé. La duplication des corps basaux joue un rôle
clé dans la division et l'organisation cellulaires, comme dans la
morphogenèse de la paramécie. La dissection génétique de ce phénomène,
pour lequel la paramécie constitue un modèle extrêmement avantageux, a
permis la découverte de nouvelles protéines.
Deux outils essentiels disponibles chez la paramécie : une génétique performante...
Plus de 50 ans de génétique classique ont permis d'accumuler près de
200 mutants
mendéliens de paramécie 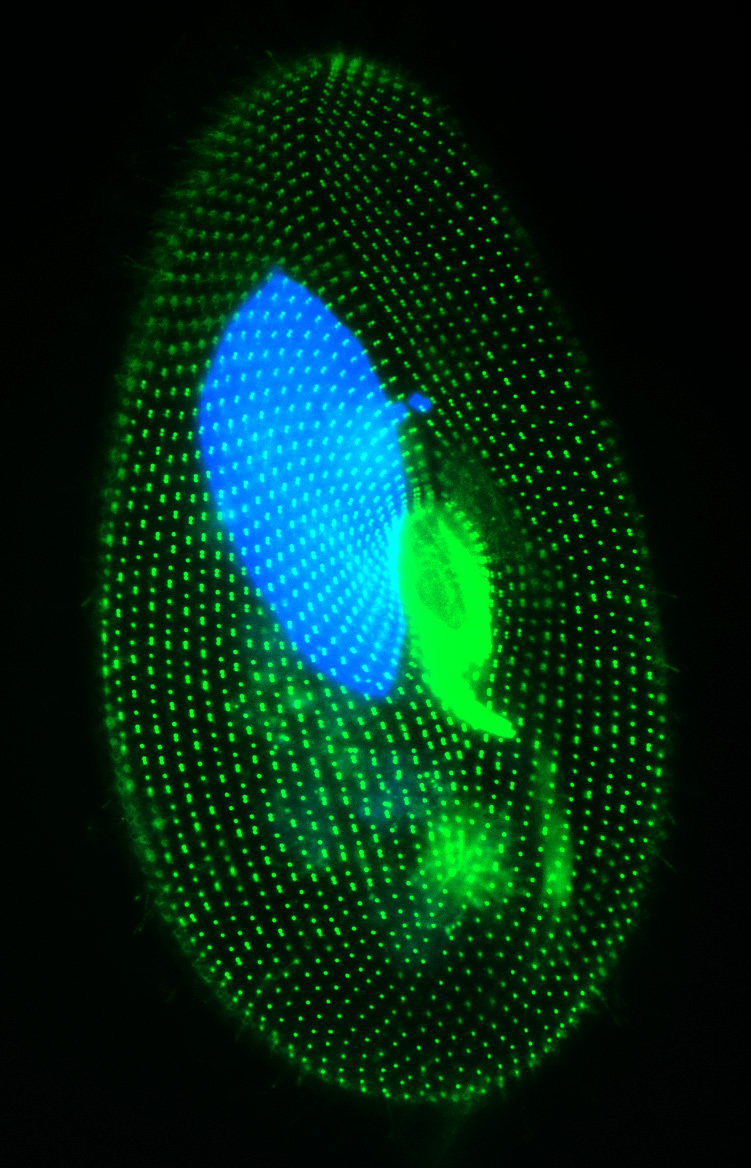
Cliquer
pour agrandir
L'utilisation d'anticorps anti-tubuline
marqués fait ici apparaître les corps basaux de la paramécie, situés à
la base des cils. Le macronoyau et les micronoyaux (deux petits points
collés à droite du macronoyau) apparaissent de nouveau en bleu. (Photo
F. Ruiz) |
affectés dans des processus cellulaires
très divers (morphogenèse, sécrétion régulée, cycle cellulaire,
variation antigénique, détermination et expression du type sexuel,
réarrangements du génome). En effet, la paramécie se prête
admirablement à l'analyse génétique en raison de ses deux modes de
reproduction sexuée, l'autogamie et la conjugaison. L'autogamie est un
processus d'autofécondation qui rend le génome zygotique entièrement
homozygote en une génération. Les souches stockées sont ainsi
manipulables comme des haploïdes. La conjugaison est un processus de
fécondation réciproque aboutissant à la formation de noyaux zygotiques
identiques dans les deux partenaires, ce qui permet d'identifier très
facilement les caractères à hérédité mendélienne et de les distinguer
des caractères à hérédité maternelle. Les gènes identifiés par
mutation peuvent être clonés par complémentation fonctionnelle.
... et une génomique fonctionnelle par interférence ARN
L'extinction génique, provoquée par l'introduction de transgènes,
fournit un outil puissant pour l'analyse fonctionnelle des
gènes. Toutefois, l'outil idéal est l'interférence ARN,
obtenue avec une remarquable efficacité chez la paramécie par
ingestion de bactéries produisant de l'ARN double brin. Cette méthode
de "feeding", originalement développée chez le nématode
Caenorhabditis elegans, permet d'envisager une analyse
fonctionnelle à grande échelle des ORFs identifiées.
La paramécie et "ses" génomes
Les noyaux de la paramécie, micronoyau et macronoyau, sont différents
tant par leur structure que par leur fonction. Le micronoyau (présent
en deux exemplaires chez l'espèce P. tetraurelia) est
diploïde, représente la lignée germinale et est totalement silencieux
pour la transcription. C'est lui qui subit la méiose et la fécondation
lors des événements sexuels (conjugaison entre cellules compétentes,
autogamie au sein d'une même cellule).
Le macronoyau, hautement polyploïde (environ 1000 n), représente la
lignée somatique et est le siège de la transcription. Le macronoyau
comme le micronoyau dérivent de copies du noyau zygotique. Le
développement programmé du macronoyau comprend une amplification de
l'ADN par un facteur d'environ 250, l'élimination précise de courtes
séquences internes appelées IES et l'élimination imprécise de régions
riches en transposons et en séquences répétées, vraisemblablement
hétérochromatiques, ce qui aboutit à la fragmentation des
chromosomes. Les extrémités ainsi créées sont réparées par ajout de
télomères.
Propriétés comparées du micronoyau et du macronoyau
|
Micronoyau |
Macronoyau |
|---|
| Ploïdie |
2 n |
~1000 n |
| Taille du génome |
100 à 120 mégabases |
80 à 90% de la complexité micronucléaire |
| Nombre de chromosomes |
~50 |
~350 |
| Taille des chromosomes |
~2 mégabases |
~300 (50 à 1000) kilobases |
La grande majorité de l'hétérochromatine est éliminée lors du
développement du macronoyau ; celui-ci est donc essentiellement
euchromatique et dépourvu de séquences répétées et de
microsatellites. Ceci représente un avantage certain pour un premier
projet de séquençage du génome, parce que la présence de séquences
répétées constitue une difficulté technique, notamment lors de l'étape
d'assemblage du génome.
Grâce notamment à cette élimination des séquences répétées, le génome
macronucléaire de la paramécie est très "compact" : on estime que sa
fraction codante est supérieure à 70% (dans le génome humain, elle est
de l'ordre de 1% !). Les introns sont uniformément petits (de 18 à 35
bases) et les régions intergéniques, généralement inférieures à 50~100
bases, peuvent n'être longues que de quelques bases (minimum de 9
bases observé jusqu'à présent). Cette remarquable compacité fait du
macronoyau un matériel de choix pour l'inventaire des gènes de la
paramécie.
Cet inventaire bénéficiera sans doute aussi du projet
de séquençage du génome de Tetrahymena thermophila, un
autre cilié évolutivement distant de plus de 100 millions d'années de
la paramécie, et sur lequel travaille également une vaste communauté
de chercheurs.
Historique du projet de séquençage de la paramécie
- Août 1999 : à l'initiative du laboratoire "Génétique de la
Dynamique Cellulaire chez la Paramécie" au Centre de Génétique
Moléculaire du CNRS de Gif-sur-Yvette, un Consortium de 11
laboratoires européens et nord américains s'est créé pour autofinancer
un projet pilote de séquençage aléatoire du génome de la paramécie. Ce
financement a permis le séquençage de 3000 extrémités d'inserts d'une
banque d'ADN du macronoyau. Les séquences
annotées ont été déposées en novembre 2000 dans la division GSS
des bases de données publiques. (P. Dessen et al. 2001, Trends Genet
17: 306-308 ; L. Sperling et al. 2002, Euk Cell 1:341-352).
- Octobre 2000 : réunion des membres européens de ce Consortium à
Varsovie pour définir la suite à donner au projet pilote. Il a été
notamment décidé d'isoler et de séquencer un chromosome du macronoyau
long d'une mégabase. Ce travail a été commencé fin 2001 et est en voie
de finition à la mi-2003.
- Juillet 2002 : le CNRS soutient la communauté scientifique
européenne en créant un Groupement De
Recherche Européen (GDRE), structure dotée d'un financement
permettant les réunions et les échanges en son sein. Une première
réunion s'est tenue à Dourdan en Octobre 2002.
- Octobre 2002 : le CNRS soutient le projet génome de la
paramécie. Il alloue un budget de 100 000 Euros, dans le cadre de son
programme de séquençage à grande échelle, pour amorcer un séquençage
de l'ADN du macronoyau de la paramécie au Genoscope.
- Avril 2003 : le Conseil Scientifique du Genoscope approuve
formellement la réalisation par le Genoscope, sur ses fonds propres,
du séquençage total de l'ADN du macronoyau de la paramécie.
|



 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

