Pourquoi séquencer une céréale?
Riz, blé, orge, maïs, sorgho, millet, canne à sucre, ... Depuis la révolution néolithique, les céréales constituent une part essentielle de l'alimentation humaine. Durant des milliers d'années, l'homme a réassorti par sélection les gènes de ces graminées pour créer les variétés domestiques que nous connaissons. De formidables progrès ont pu ainsi être accomplis en matière de qualité gustative, de valeur nutritionnelle et de productivité, notamment au cours de la "révolution verte" dans les années 1960 et 1970. Toutefois, la révolution verte a aussi connu des échecs, et l'on ne peut plus miser comme auparavant sur la diffusion universelle de quelques variétés "à haut rendement". Les avancées agronomiques requises aujourd'hui par l'explosion démographique mondiale, le recul des terres arables et le changement climatique, nécessitent une nouvelle révolution : le séquençage du génome d'une céréale.
A partir de la séquence génomique, on peut en effet:
- Dresser un inventaire plus ou moins exhaustif des gènes de la céréale, et tenter de leur assigner une fonction.
- Identifier des "gènes candidats" pour tel ou tel caractère agronomique cartographié dans un intervalle génétique.
- Accéder à quantité de nouveaux marqueurs chromosomiques pour assister la sélection et faciliter la création de nouvelles variétés.
- Constituer des "puces à ADN" pour l'analyse globale de l'expression des gènes de la céréale dans différentes conditions.
- et faire d'autres choses encore...
haut de page
Le riz, céréale modèle
Le riz (
Oryza sativa) s'est imposé comme la céréale à séquencer en priorité. Parmi toutes les céréales, il possède en effet le plus petit génome : 430 millions de nucléotides. Le génome du maïs est 5 fois plus gros, et celui du blé, 40 fois plus gros ! Or on retrouve d'une céréale à une autre de grands blocs de gènes homologues dont l'arrangement est relativement conservé. Ce phénomène, nommé synténie, fait du riz un bon point d'entrée pour caractériser les gènes des autres céréales, et les associer à tel ou tel trait agronomique. Plus largement, le riz peut servir de génome modèle pour l'un des deux grand groupes de plantes à fleurs, les monocotylédones, tout comme
l'arabette (Arabidopsis thaliana) pour l'autre groupe, les dicotylédones. Le statut de "plante modèle" du riz est en outre conforté par l'existence de nombreuses ressources pour l'approche génomique, dont d'excellentes cartes génétiques et des
techniques de transformation génétique efficaces qui font du riz la céréale la plus facile à transformer.
Enfin, le riz constitue d'ores et déjà un modèle dans plusieurs domaines, puisqu'il fait l'objet de nombreux travaux sur le rendement, la vigueur hybride, la génétique des résistances aux maladies et celle des réponses adaptatives. Les chercheurs profitent en effet de l'existence d'une multitude de variétés adaptées à une gamme très large de conditions environnementales, de sols secs en régions tempérées aux cultures inondées en régions tropicales.
Mais le génome du riz est aussi intéressant en lui-même, car cette céréale constitue la base quotidienne de l'alimentation de plus de la moitié de l'humanité. La production de riz représente aujourd'hui 30% de la production mondiale de céréales. Elle a doublé en trente ans, en partie grâce à l'introduction de nouvelles variétés, mais sa croissance actuelle peine à suivre celle de la consommation : en 2025, ce seront 4,6 milliards de personnes, au lieu des 3 milliards actuelles, qui dépendront du riz pour leur consommation quotidienne. La production doit donc connaître un nouveau bond. Dans le même temps, les petits producteurs doivent se tourner vers des terrains de culture moins favorables, par exemple saumâtres, et l'approvisionnement en eau devient de plus en plus problématique.
La connaissance du génome du riz sera une aubaine pour les
sélectionneurs qui cherchent à accroître le rendement et à créer de
nouvelles variétés résistantes aux maladies, aux ravageurs, à la
sécheresse ou à la salinité. Elle permettra de repérer les gènes
intéressants d'un point de vue agronomique et de rechercher les variants
alléliques avantageux dans la collection de plus de 90 000 variétés
traditionnelles et espèces sauvages de riz gérée par
l'Institut International de Recherche Rizicole
(IRRI). Cet intérêt renouvelé pour la diversité génétique du riz
devrait accélérer la prise de conscience de l'érosion génétique due à
l'abandon des variétés traditionnelles au profit des variétés à haut
rendement, une conséquence malheureuse de la révolution verte. Le
développement de la génomique du riz pourrait constituer un tournant en
permettant le transfert plus rapide de traits avantageux dans des
variétés localement adaptées.
haut de page
La genèse du projet "génome du riz"
Les débuts de l'exploration du génome du riz remontent aux années
1980, avec l'implication de quelques équipes chinoises, japonaises et
américaines. Les choses s'accélèrent au début des années 1990,
lorsqu'on prend conscience que le riz constitue la "pierre de Rosette"
des céréales, pour reprendre le mot de Chris Sommerville, de
l'Université Stanford. L'intérêt accru pour le riz dans les secteurs
académique et privé aiguillonne le Japon, pour qui cette céréale
constitue une cause nationale. Ce pays réorganise alors un projet de
cartographie du génome du riz pour créer le
Rice Genome Research
Program (RGP). Confortablement financé, le RGP s'impose sur la
scène du génome du riz et se fait bientôt l'avocat d'un effort de
séquençage international. L'idée est approuvée de façon informelle en
1997, lors d'un congrès à Singapour soutenu par la fondation
Rockefeller. Les pays participants (Japon, Chine, Union Européenne,
Etats-Unis, Corée du Sud) s'accordent sur divers aspects du projet :
- Le choix d'un matériel commun, les graines d'une plante unique de la variété Nipponbare ou GA3, pour le séquençage. Ce choix est dicté par les ressources déjà constituées par le RGP à partir de ce cultivar : cartes de STS (Sequence Tagged Sites), collections importantes d'EST (Expressed Sequence Tags) et d'ADNc (ADN complémentaires), carte physique de YAC (Yeast Artificial Chromosomes) couvrant plus de 50% du génome. La variété à long grain Nipponbare appartient à la sous-espèce japonica (riz pluvial traditionnel ou "riz de plateau"), cultivée préférentiellement au Japon et dans les régions de climat tempéré, comme en Europe.
- Le choix de la stratégie de séquençage "clone par clone" retenue
notamment pour le séquençage des génomes de l'homme et
d'Arabidopsis thaliana. Cette stratégie implique un effort de
cartographie pour ordonner de grands clones génomiques qui sont
séquencés individuellement (voir Stratégie de séquençage), mais elle est la seule qui garantisse l'achèvement du séquençage. L'objectif affiché à l'horizon de 2008 est bien de parvenir, comme pour le génome humain et celui de l'arabette, à une séquence "finie", avec un minimum de trous et un taux de précision de 99,99% (moins de deux erreurs tous les 10 000 nucléotides). Si le riz doit servir de modèle pour les génomes des autres céréales, il importe en effet que la séquence de son génome soit déterminée le plus précisément possible, et ce d'autant qu'il demeurera peut être la seule céréale intégralement séquencée.
- Enfin, l'acceptation d'une collaboration internationale passant
par la répartition des douze chromosomes du riz entre les partenaires
et par l'échange sans délai de clones et d'informations de
cartographie et de séquence. A partir d'un certain niveau de qualité,
ces données de séquence doivent être déposées dans les bases de
données publiques pour être librement accessibles aux chercheurs du
monde entier, qu'ils appartiennent au secteur académique ou privé.
Cette collaboration est entérinée en février 1998 par la création d'un
consortium international,
l'IRGSP, réunissant
initialement le Japon, la Chine, les Etats-Unis, la Corée du Sud et le
Royaume-Uni. Ce dernier pays fait bientôt défection, tout comme la
Thaïlande et le Canada, venus renforcer le consortium. En revanche,
l'IRGSP est rejoint durablement par la France, Taiwan, l'Inde puis le
Brésil. Dès 1998, notre pays manifeste son intention de participer au
consortium en séquençant le chromosome 12 du riz, long de 30 millions
de nucléotides. Ce choix est dû en partie au travail de cartographie
préalable effectué sur ce chromosome à l'IRD à Montpellier
(cartographie de loci de résistance à divers pathogènes, dont le virus
de la panachure jaune du riz). Il faut aussi mentionner l'existence
d'une correspondance entre le chromosome 12 du riz et une région du
chromosome 5 du blé où l'on a cartographié un locus génétique impliqué
dans la dureté des grains de blé. Ce caractère détermine la qualité
boulangère de la farine et intéresse les semenciers français. La phase
initiale de la participation française implique des équipes de l'IRD
et du CIRAD. En collaboration avec ces équipes, le Genoscope définit
quelques "points de nucléation" le long du chromosome 12 à partir
desquels le travail de séquençage démarre en 2000.
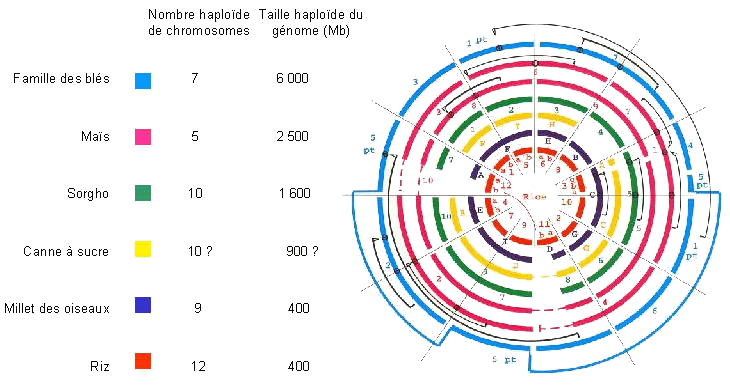
Alignement des chromosomes de six céréales (pour un
nombre "haploïde" de chromosomes) avec les 12 chromosomes du riz par
la mise en correspondance des cartes génétiques. Chaque secteur de la
roue correspond à un bloc de liaison dans le génome du riz. On
constate le degré très élevé de synténie entre les céréales, malgré la
différence importante entre les tailles des génomes. Le "petit" génome
du riz apparaît donc comme un modèle idéal pour la recherche de gènes
homologues au sein de régions synténiques dans le "gros" génome du
blé. (Adapté de G. Moore et al., Curr. Biol. 5:737-739,
1995)
haut de page
L'ébauche de Monsanto
La situation se complique en avril 2000 lorsque la société d'agrobiotechnologie Monsanto annonce qu'elle dispose de sa propre "ébauche" du génome du riz. La firme avait confié le travail au laboratoire de Leroy Hood, à l'université de Washington, à Seattle. Celui-ci a suivi la même stratégie "clone par clone" que l'IRGSP : un travail de cartographie physique a permis la sélection d'environ 3500 grands clones génomiques couvrant le génome du cultivar Nipponbare. La plupart de ces clones ont été séquencés à une profondeur de 5X, données auxquelles s'ajoutent les séquences de leurs extrémités.
Le résultat de ce travail est une ébauche sommaire du génome du riz,
mais sans doute suffisante pour que Monsanto tente de caractériser, à
partir du riz, des gènes économiquement intéressants parmi les autres
céréales. L'enjeu industriel du génome du riz est en effet bien
moindre que ceux des génomes du maïs et du blé. Cela explique peut
être l'offre faite à l'IRGSP : dans la foulée de son annonce, Monsanto
propose aux chercheurs du consortium un accès priviligié aux données
brutes de séquence et de cartographie physique de l'ébauche, à
condition de ne pas les divulguer avant de les avoir combinées aux
données "publiques" et de ne pas déposer de brevets sur les données
non encore combinées sans avoir d'abord laissé à Monsanto la
possibilité d'obtenir une licence. Monsanto autorise, par ailleurs, à tous les chercheurs
intéressés, des recherches limitées sur un
site dédié, après que
l'utilisateur se soit enregistré.
A la suite de l'offre de Monsanto, certains au sein de l'IRGSP
craignent un désengagement des institutions qui financent le
projet. Les chercheurs du consortium s'appliquent dès lors à expliquer
que l'ébauche incomplète de Monsanto est loin de correspondre au but
fixé par le consortium. En revanche, l'intégration de ces données va
accélérer la progression vers une séquence de qualité finie et réduire
son coût. Dans l'ébauche génomique de l'IRGSP début 2003, environ 30%
des clones BAC proviennent de la carte de Monsanto, et les données
de séquence de la firme sous-tendent environ 25% des séquences
déposées par le consortium dans les bases de données publiques.
haut de page
L'ébauche de Syngenta
En janvier 2001, c'est au tour de la société Syngenta d'annoncer
l'obtention d'une
ébauche du
génome de la variété japonica au terme d'une collaboration
avec la compagnie
Myriad
Genetics. Contrairement à Monsanto, Syngenta a choisi la stratégie
du "full genome shotgun" : l'ensemble du génome du riz est fragmenté
en petits morceaux qui sont séquencés et à partir desquels on tente de
réassembler la séquence totale. Cela a permis à Syngenta d'avancer
vite en faisant l'économie du travail de cartographie et de disposer
d'un aperçu du génome du riz sans attendre le terme de 2008
initialement fixé par l'IRGSP. Mais, avec une profondeur de 6X,
l'ébauche assemblée début 2000 est un ensemble de plus de 40 000
fragments, dont une partie seulement sont "ancrés" le long des
chromosomes, et qui ne couvrent que 93% du génome. Là encore, cette
ébauche, bien que plus complète que celle de Monsanto, est loin de la
version "finie" visée par le consortium. Pas plus que celle de
Monsanto, elle n'est versée dans les bases de données publiques, et ne
donne lieu à une publication qu'en avril 2002 dans la revue
Science.
En revanche, un accès privilégié est accordé à l'IRGSP et aux
laboratoires académiques.
La stratégie du "full genome shotgun" a aussi été adoptée par un groupe académique chinois, le Beijing Genomics Institute (BGI), désireux de séquencer un cultivar appartenant à la sous-espèce
indica du riz, ainsi qu'un second cultivar principalement dérivé d'
indica. Ce riz irrigué traditionnel, ou "riz de bas-fond", est le plus consommé dans le monde, notamment en Chine. Les deux cultivars choisis par le BGI sont d'ailleurs les parents du riz "super-hybride" hautement productif qui est largement cultivé en Chine. Les chercheurs chinois ont réalisé un
assemblage à 4X sur le premier cultivar ; le résultat, annoncé en octobre 2001 et décrit en avril 2002 dans la revue
Science, est un ensemble de plus de 100 000 fragments, non ancrés le long des chromosomes. Bien que les séquences du BGI soient accessibles dans les bases de données publiques, les chercheurs de l'IRGSP ne peuvent utiliser ces données dérivées d'
indica aussi directement que les données de Monsanto et de Syngenta, obtenues sur Nipponbare.
haut de page
La réponse du consortium international
En février 2001, quelques semaines après le communiqué de Syngenta, l'IRGSP annonce un changement de stratégie pour réagir à cette nouvelle initiative privée et tenir compte de l'apport de Monsanto:
 |
le consortium vise désormais l'obtention préalable d'une ébauche de haute qualité du génome du riz. L'objectif est de séquencer le génome à une profondeur de 10X pour obtenir des séquences dites "de phase 2", où chaque grand clone est couvert par un petit nombre de blocs de séquence ordonnés et orientés. En décembre 2001, les progrès dans l'avancement du projet et les perspectives de financement permettent de planifier l'obtention de cette ébauche de haute qualité à fin 2002. Il s'agit d'offrir le plus rapidement possible aux chercheurs en biologie végétale et aux sélectionneurs la possibilité d'exploiter l'information génomique. Une telle ébauche le permet, puisque la stratégie du "shotgun hiérarchique" suivie par l'IRGSP livre des séquences parfaitement ancrées le long du génome. L'identification des gènes peut également être entamée avec une relative confiance sur l'ébauche de phase 2, mais le travail définitif devra attendre la séquence finie.
L'obtention de l'ébauche de haute qualité est annoncée le 18 décembre
2002, lors d'une cérémonie officielle à Tokyo. Le travail de l'IRGSP
est notamment salué par des messages des présidents américain et
français et du premier ministre japonais. Avec une
couverture de 10X, le taux de précision est d'ores et déjà de 99,99%,
mais il reste à "boucher" les 3 500 trous environ qui demeurent entre
les grands blocs ordonnés et orientés qui constituent l'ébauche. Le
projet se trouve désormais dans cette phase de finition, qui devrait
s'achever aux alentours de décembre 2004. Le travail de finition
bénéficie de
la mise à
disposition par Syngenta depuis mai 2002 des séquences de son
ébauche.
haut de page
Pourquoi "finir" le génome du riz ?
Il est déjà possible de mesurer la valeur d'une séquence finie. Le 21 novembre 2002, avant même l'annonce de Tokyo, la revue
Nature publie
les séquences finies des chromosomes 1 et 4 de
japonica, obtenues respectivement par les équipes japonaise et chinoise du consortium. La comparaison directe avec l'ébauche de Syngenta est impossible, puisque cet assemblage n'est pas librement accessible, mais les résultats de l'annotation peuvent être comparés. L'équipe japonaise du RGP a délimité 6 756 gènes sur le chromosome 1, alors que Syngenta n'en a annoncé que 4 467, dont la moitié prédits sans séquence codante complète. De même, une comparaison directe d'une partie de la séquence finie du chromosome 1 de
japonica avec les séquences de l'ébauche à 4X d'
indica révèle qu'un tiers des gènes annotés par le RGP ne sont que partiellement prédits dans l'annotation d'
indica, et que 10% y sont absents.
On voit que la prédiction des gènes dépend étroitement de la qualité
de la séquence : il est impossible de prétendre les identifier tous à
partir d'une ébauche. Or seule une vision exhaustive du bagage de
gènes du riz permettra de s'assurer que telle ou telle voie
métabolique est effectivement absente, ce qui peut être important dans
la perspective d'une "ingénierie métabolique" de cette céréale (voir
l'exemple du "riz doré"). En outre, la qualité de la séquence influe
également sur l'analyse des duplications et des séquences
répétées. Les premières doivent être prises en compte si l'on veut
créer de nouveaux traits agronomiques par la modification de
l'expression d'un ou de plusieurs gènes, car ceux-ci peuvent posséder
des copies ailleurs dans le génome. Quant aux séquences répétées,
elles constituent un élément dynamique du génome qui est impliqué dans
la génération d'une part importante de la variation allélique
exploitée par les sélectionneurs.
La finition
de l'ensemble du génome du riz apparaît donc indispensable si l'on
veut en tirer tous les profits pour l'étude et l'amélioration de cette
plante et des autres céréales.
haut de page
Exploiter la séquence
Aux bénéfices d'une séquence précise à 99,99% s'ajoute ceux d'une séquence " ancrée " par rapport aux cartes physique et génétique : pour un trait agronomique cartographié dans un intervalle génétique, il sera possible de rechercher les séquences génomiques correspondantes, et l'ensemble des gènes annotés dans l'intervalle. Les informations disponibles sur la fonction de ces gènes permettront alors de retenir un ou plusieurs "gènes candidats" pour le trait considéré. La validation d'un candidat pourra notamment passer par l'étude de son expression et de sa variabilité allélique dans plusieurs variétés différant pour le trait étudié, ainsi que par l'étude de plantes mutées ou génétiquement transformées, dans lesquelles l'expression du gène est éteinte ou augmentée.
En utilisant l'ébauche génomique de l'IRGSP, une équipe japonaise est ainsi parvenue à identifier en octobre 2002
un gène impliqué dans la précocité de floraison du riz, qui pourrait s'avérer d'une grande importance pour l'adaptation de variétés à différentes latitudes. Selon les auteurs de cette étude, le projet Génome du riz leur aurait fait gagner entre un et trois ans dans cette chasse au gène.
La recherche de gènes candidats pourra aussi être effectuée par l'analyse des profils d'expression de l'ensemble des gènes du riz, échantillonnés sur des puces à ADN. Ces profils d'expression pourront être comparés pour différentes variétés, différentes conditions de culture ou pour la présence de différents pathogènes.
Les chercheurs de Syngenta ont d'ores et déjà utilisé une
puce échantillonnant 21 000 gènes de riz présumés pour identifier plusieurs centaines de gènes exprimés lors du remplissage du grain.
La séquence du génome du riz va en outre révéler une grande quantité de nouveaux marqueurs moléculaires de type
microsatellite qui permettront d'affiner l'analyse génétique, par rapport aux anciens marqueurs de type RFLP. Grâce à la qualité de la séquence finie, on pourra également identifier des polymorphismes de type SNP sans risque de confusion avec des erreurs de séquençage. En dehors de la recherche de gènes candidats, ces nouveaux marqueurs faciliteront et accéléreront aussi la création de nouvelles variétés par
sélection assistée par marqueurs : grâce à des marqueurs plus étroitement associés au locus responsable d'un caractère, on pourra mieux suivre sa transmission au fil des croisements et réduire le matériel génétique indésirable transmis en même temps que lui. Mieux, lorsque le caractère est associé à un ou plusieurs allèle(s) identifié(s), la séquence de cet (ces) allèle(s) fournira un marqueur absolu.
Grâce à ces nouvelles opportunités pour explorer l'énorme collection
de variants alléliques du riz et pour les introduire par croisements
dans une variété élite, on devrait profiter d'alternatives à la
transgénèse : lorsque des homologues du ou des gènes "étrangers" que
l'on souhaite introduire par transgénèse sont présents mais inactifs
dans le cultivar d'intérêt, l'on pourrait plutôt tenter d'obtenir le
phénotype recherché par voie de sélection, en croisant le cultivar
avec des variétés locales ou des espèces sauvages de riz porteuses
d'allèles "actifs", ou encore avec des plantes mutantes pour ce ou ces
gènes (voir le
concept
de TILLING pour le criblage de grandes collections de mutants). La
voie est également ouverte pour la "construction de génotypes",
consistant à créer des combinaisons d'allèles optimales.
haut de page
L'annotation du génome du riz
Pour que ces applications deviennent possibles, il faut disposer d'un catalogue des gènes du riz. Un premier niveau d'annotation est entrepris à partir de l'ébauche de haute qualité de l'IRGSP, "figée" au 8 janvier 2003, par deux groupes, TIGR aux Etats-Unis et le RGP à Tsukuba, au Japon. Leurs résultats devraient être disponibles après l'été 2003. Il s'agit d'une annotation
ab initio, à l'aide de programme de recherche de gènes calibrés lors de l'annotation du génome d'
Arabidopsis, et qui ont été adaptés aux caractéristiques des gènes de graminées. Ces programmes ne livrent que des prédictions qui restent à valider expérimentalement. Divers projets de génomique fonctionnelle devraient y contribuer. L'IRRI a notamment mis en place un
consortium international pour la génomique fonctionnelle du riz. Un outil puissant est la mutagenèse par insertion aléatoire de transposons dans les gènes du riz. Des collections de dizaines de milliers de telles lignées mutantes ont été créées au RGP au Japon et en Corée. En France, une
collection de lignées d'insertion de riz est produite dans le cadre du programme Génoplante. Une alternative à la mutagenèse aléatoire pourrait également s'ouvrir : des chercheurs japonais ont ainsi réussi à inactiver de façon ciblée un gène de riz par recombinaison homologue. Enfin, la méthode de TILLING déjà évoquée permet d'identifier des plantes mutées dans tel ou tel gène en criblant des lignées produites par mutagenèse aléatoire.
La disponibilité de la séquence entière du génome d'une autre plante,
Arabidopsis thaliana, offre un moyen de compléter les annotations
produites par TIGR et le RGP. Le Genoscope dispose pour ce faire d'un
outil de génomique comparative, Exofish, pour la recherche de régions
conservées au cours de l'évolution. Entre deux génomes suffisamment
distants, ces régions, ou Ecores, correspondent aux séquences des
exons avec une spécificité élevée. Exofish a déjà été utilisé avec la
séquence génomique d'
Arabidopsis thaliana pour
explorer les 3200 clones BAC de l'ébauche de haute qualité de la
séquence du riz (résultats bientôt accessibles sur le site du
Comparative Genoscope). Ces ecores assisteront le processus
d'annotation en cours en pointant l'existence potentielle de gènes non-annotés, et une possible extension de certains gènes annotés.
Avec l'annotation en cours et la finition de la séquence du riz avant la fin de l'année 2004, une riche récolte de résultats devrait suivre pour la communauté scientifique, notamment les organismes de recherche français (CNRS, INRA, CIRAD, IRD) qui ont soutenu la participation française, mais aussi pour le secteur privé qui attend beaucoup de ce génome.
haut de page



 Le Genoscope fait partie d'un consortium international pour le séquençage du génome du riz, l'
 home |
présentation |
ressources |
séquençage |
actualités |
presse |
site |
mentions légales

